
= 80
4 „. =
о 60
3en _ ae ee
840, \ ese
5 SR
5 30 < \ Х oe Meee, .
: aires
: 5
§2 20] 4 ei cr
Е 10 |:
чо `
& р 2 <
“402277”-10
-20
Oré."30 100 200 300 360
Период физиологического цикла, дней
„—ыОтложение энергии че нии вые Теплопродукция sm =" =Энергия пере-
в теле варимых пита-
нана»:
в „Выделение энергии == = —Энергия поддержания тельных веществ
ом жизни коровы
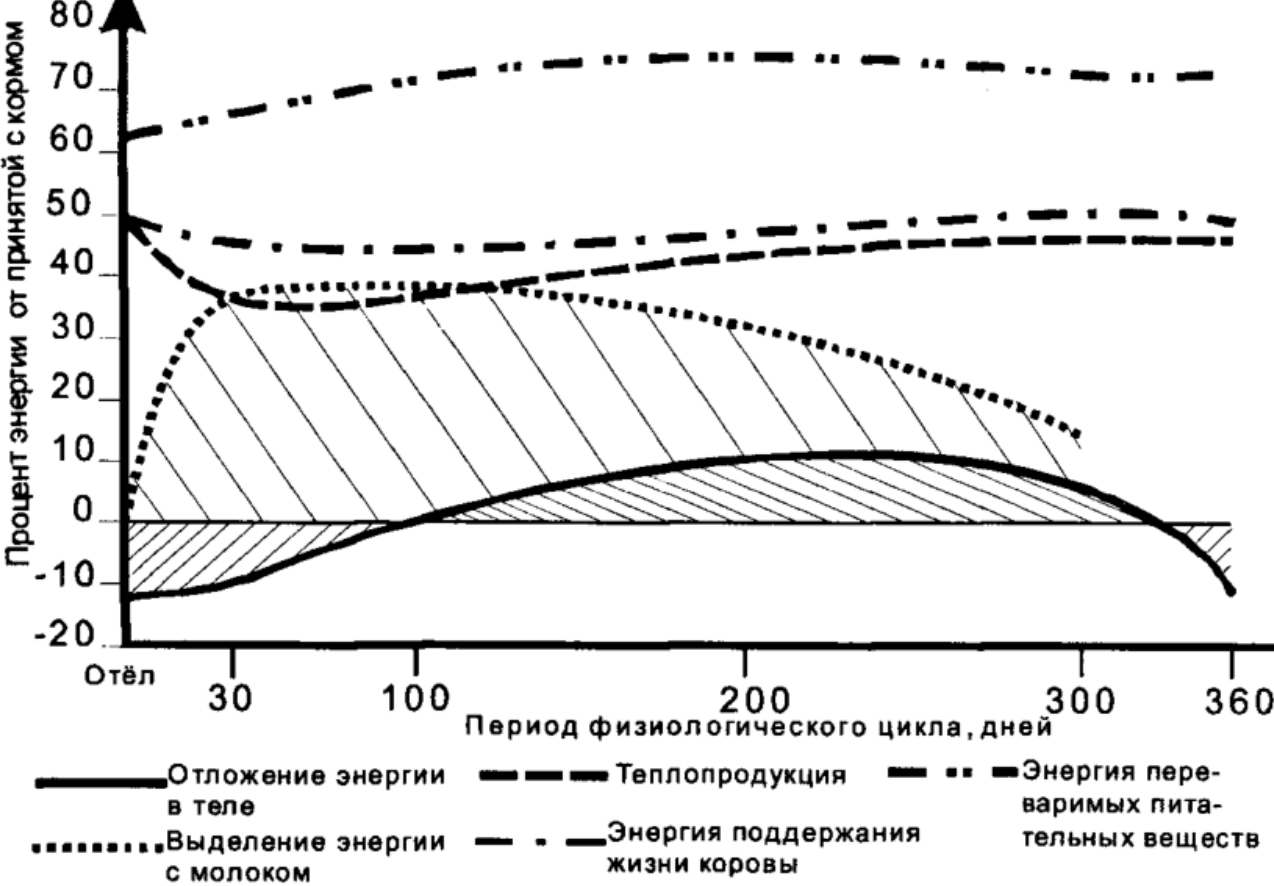
Рис.18. Распределение энергии в % от валовой, принятой с хормом
Анализируя динамику распределения энергии по фазам лактации (рис.18) можно заметить, что за первые 30 дней после отёла у коровы происходит постепенная стабилизация непродуктивных энергопотерь.
Стабильное состояние сохраняется в период 30-270 дней лактации, а к моменту запуска и, особенно, в сухостойный период происходит существенное изменение в характере использования энергии в организме. Уровень теплопродукции возрастает с 46,9 до 66,9%. На фоне роста непродуктивных энергозатрат значительно снижается энергия продукции. В последние 2 недели периода вплоть до отёла отложение энергии в теле коровы практически не происходит, оно значительно усиливается только локально — в плоде и половых органах животного, подготавливающегося к родам.
Относительный уровень теплопродукции возрастает при увеличении доли объёмистых (особенно грубых) кормов в рационе и уменьшается, при возрастании концентрации энергии в сухом веществе рациона.
По данным В.В.Цюпко (1984) потребность жвачных в энергии
на поддержание жизни (основной обмен) составляет около 80 ккал (337 КДж) на каждый килограмм обменной живой массы (массы тела в степени 0,75). Подобный подход определения расхода энергии на поддержание жизни характерен и для большинства других исследований основного обмена у животных. Причём с увеличением массы общие затраты на поддержание жизни возрастают, а удельные - на 1 кг этой массы падают, что обусловлено изменением соотношения массы и площади поверхности тела. На практике это означает, что меньшее по размерам животное имеет более высокий уровень обмена вещества на 1 кг живой массы, чем животное крупное, и, следовательно, удельные его расходы на поддержание выше. Следовательно, и с экономической точки зрения выгоднее содержать крупных коров, затрачивающих меньше энергии на поддержание жизни в расчёте на единицу массы тела.
Однако кроме главного (живая масса) немало других факторов регулирующих расходы энергии на поддержание жизни. Содержание коров в некомфортных условиях (цементный пол, отсутствие подстилки, сырость пола, занавоженность) заставляют корову больше находиться в стоячем положении, чем в лежачем. По данным М.Е.Энсмингера и др. (1997) это увеличивает потребность энергии на поддержание в среднем на 9%, а, значит, снижает продуктивность (удой) на такой же уровень.
Рост энергозатрат основного обмена наблюдается при повышенной влажности, низкой и наоборот очень высокой температуре воздуха в помещении. Подобным образом меняются затраты энергии на поддержание жизнив зависимости от сезона года. Зимой и в жаркую погоду они выше, чем в периоды комфортных температур осенью и весной.
Длительные переходы коров на большие расстояния к пастбищу (водопою) заставляют организм резко увеличить энергетические затраты на механическую работу. Каждые 2 км пути коровы массой 500 кг — это механическая работа животного, равная 1т/км, что по энергетическим расходам соответствует непродуктивному использованию 1,5 кг концкормов.
Стресс животного, независимо от причины его вызывающей, значительно увеличивает потребность жвачных в питательных веществах на поддержание жизни. Таким же влиянием обладает
и любая болезнь коров. Хронические заболевания, как правило, заканчиваются истощением животных независимо от того, сколько животное потребляет корма. Следовательно, в этом случае вся энергия, поступившая в организм с кормом, может быть без остатка истрачена на поддержание жизни.
Нервным животным требуется больше питательных веществ на поддержание жизни, чем спокойным.
Возрастают поддерживающие энергозатраты в период половой охоты. Выше они на 10% у лактирующих коров по сравнению с сухостойными М.Е.Энсмингер, и др. (1997)
С увеличением уровня молочной продуктивности абсолютная величина поддерживающих затрат питательных веществ и энергии увеличивается не пропорционально удою. Поэтому, всякое повышение молочной продуктивности приводит к значительному сокращению относительных расходов корма на поддержание жизни. Следовательно, рост продуктивности на фоне медленно меняющихся затрат на поддержание значительно превышает эффективность использования корма. Это значит, что скудное кормление — это расточительство кормов и наоборот, кормление, обеспечивающее фактический генетический потенциал самая экономная форма их расходования.
Важная роль в регулировании затрат на поддержание жизни принадлежит индивидуальным особенностям животных. В силу этого трудно найти даже двух одинаковых коров с равными показателями поддерживающего обмена.
И всё же наибольший интерес для животновода (исследователя) представляет анализ закономерностей формирования продуктивности жвачных — образование молока, рост плода, рост собственной массы тела.
Секреция молока — сложный нейро-гуморальный процесс, контролируемый железами внутренней секреции, центральной и периферической нервной системой.
Гормональный фактор стимуляции секреции молока имеет преобладающее значение сразу после отёла. Он практически не зависит от обеспечения животных кормами и определяется, главным образом, наследственными задатками коровы. В начале лактации гормональное влияние настолько велико, что даже
