
Перед проведением эксперимента названные штаммы выращивали в течение 18-24 часов na LB-arape в присутствии 100 мкг/мл ампициллина - селективного фактора гибридных плазмид, после чего полученную биомассу переносили в свежий ГВ-бульон и дополнительно подращивали до ранней экспоненциальнойОбъектами исследованияфазы (01540=явилась0,35 ед.).рубцовая жидкость мясного крупного рогатого скота казахской белоголовой породы, использованная в экспериментах в нативном состоянии после грубой фильтрации, либо после центрифугирования при 1000 g в течение 15 минут с использованием центрифуги СМ-6М (Элми, Россия). Последовательные двукратные разведения осуществляли физиологическим раствором в 96-луночном планшете до титра 1:1024. Реакционную смесь формировали в непрозрачных лунках планшета, при этом вносили 100 мкл бактериальных биосенсоров и 100 мкл испытуемой рубцовой жидкости, после чего планшет помещали в измерительный отсек люминометра LM-01T (Immunotech, Чехия) и проводили измерение в кинетическом режиме с использованием программы «Kilia» в течение 60 минут в случае с сенсорным штаммом и 120 минут при использовании репортерного штамма. Полученные экспериментальные данные были обработаны с использованиемНа пакета офисных программ Microsoft. жидкости первомс использованиемэтапе было оцененосенсорныхобщее токсическоебактериальныхдействиештаммоврубцовойс конститутивным свечением. Данный эффект выявляется по уровню тушения люминесценции в опытном образце по сравнению с контрольными пробами и основан на прямой связи данного явления с общим метаболизмом клетки и ее жизнеспособности. При контакте нативной рубцовой жидкости с сенсорными люминесцирующими бактериями E.coli было зарегистрировано дозозависимое ингибирование свечения в первые секунды контакта. При этом ко второй минуте контакта тушение составило до 5,20 + 0,59 % в случае с исходной средой и убывало в ряду двухкратных разведений до 102,56 + 4,83 % при титре 1:1024 (рис.1). С одной стороны это может быть спровоцировано агрессивными компонентами, входящими в состав рубцовой жидкости, что ведет к нарушению целостности мембран и гибели клеток. С другой стороны, данное явление может быть вызвано сменой напряженности протонного потенциала ввиду попадания клеток в среду с более низкими значениями кислотности. Возможным следствием подобного эффекта является поглощение фотонов компонентами рубцовой жидкости. ввиду ее мутности и окрашенности, что воспринимается как токсическое воздействие отдельных компонентов, так как при дальнейшем изучении кинетики свечения бактериальных клеток наблюдается усиление свечения, превышающее таковое в контрольных пробах. Так, после 30 минут инкубации смеси уровень свечения в пробе с нативной рубцовой жидкостью достигает контрольного и с течением времени повышается до 190,59 + 22,15 % после 60 минут контакта. При этом разведение
исходной изучаемой жидкости позволяло зарегистрировать еще большую стимуляцию люминесценции биосенсоров, при титре Е достигающую пиковых значений и составляющую 1223,52 + 119,58 % от контрольных. Дальнейшее разведение вплоть до 1:1024 не дает дополнительной стимуляции свечения, параллельно не оказывая ингибирующее воздействие в первые минуты контакта. С другой стороны, проведение дополнительной процедуры центрифугирования рубцовой жидкости при 10008 в течение 15 минут с целью осаждения взвешенных частиц не привело к значимым изменениям получаемых результатов и позволяет рекомендовать проводить оценку данной биологической жидкости в исходном нативном состоянии.
Полученные данные по оценке общей токсичности характеризуют рубцовую жидкость как достаточно благоприятную среду для роста бактерий, несмотря на первоначальное дезинтеграционное воздействие на бактериальные клетки. Это обеспечивается обилием питательных субстратов различного уровня ферментации в данной среде, включая даже такой легкодоступный метаболит как глюкоза.
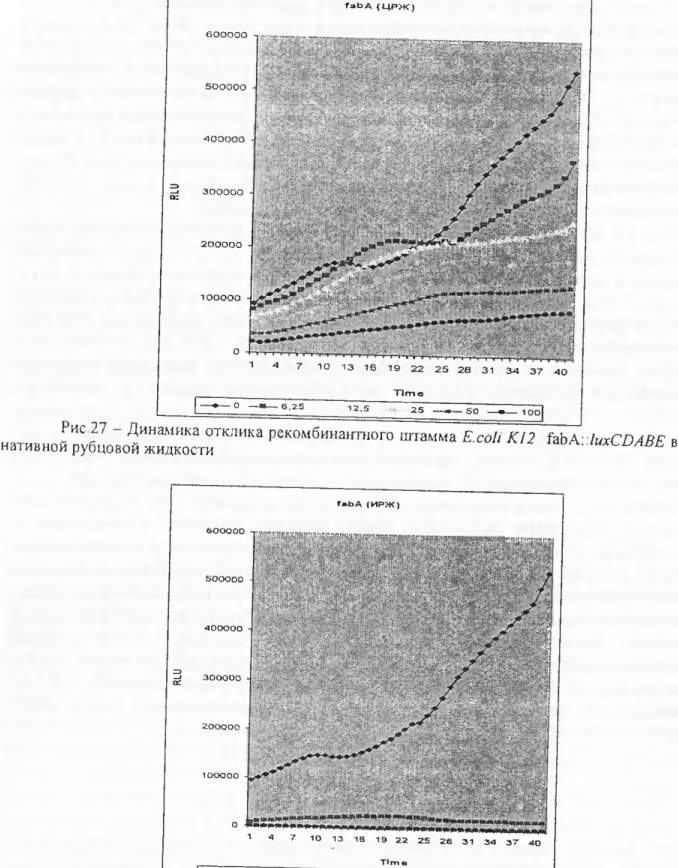
Дальнейшие исследования были направлены на выявление характера воздействия рубцовой жидкости на бактериальные клетки и выяснения особенностей ответа клеток. В таком случае, если в среде присутствует фактор активации специфического промотора, интегрированного непосредственно перед [ихСРАВЕ генами, начинается экспрессия последних, что отражается увеличениеммеханизмов воздействиясвечения. В нативнойнашей ‚работерубцовойбыло жидкостиосуществленона бактериальныеисследование клетки, при этом проведена серия экспериментов с использованием репортерных штаммов бактерий, у которых стресс море клонированы перед генами свечения, Применение штамма E.coli SabA::lux, р р использованный промотор отвечает за синтез ие (6) дегидразы, представляющего собой ключевой фермент реакций ИОСИНТЕЗА жирных кислот мембраны, а также штамма E.coli ibpA::lux, в которой специфический промотор отвечает за синтез шаперона теплового Ro связывающего белки и облегчающего их последующий рефолдинг в зависимыми шаперонами , не позволило зарегистрировать каких либо значительных эффектов (рис.27).
faba a(UPD
600000 аЕ ен
500000 елПВАBesОates eeСЕН НЫaegisСА PekАЕ ks = ИgtPit
£00000 42И‚a PERE oeSea МЕay ageBOSS =KASMeeИЕНboasя
ReeseОНР И
2 s00000 Pecoа gene
200000 isis, УЧ: tae be aie = я
|иЕ7 RU granarygyа
рт гоиИвsat
Аетао
ЕН ae г co
14 yz че ао 22h 25) zal aims lar vad
ae a esро
нативной рубцовой жидкости
Рис27 — Динамика отклика рекомбинантного штамма E.coli К12 fabA::luxCDABE в
:
faba (ner
о рии ее
eeа hee _ a иНТSs — /
Ри. ииeeНио.eee ee See eeЯ
п. т ии i
а See err oe
р и т eet
СО о.аeSтьоеаооя.
200000 ОВ о taco
ЕОАPE OIEт а. маааа Raaгиeea 4
и
fecoee, geт ОИores ereстен ey
тЕ7 10 р13за16 19Timeо22 25 ze 3 2 se 377 40
Рис. 28 — Динамика отклика рекомбинантного штамма E.coli К12 fabA::luxCDABEв искусственной рубцовой Идо Однако штамм E.coli katG::lux, в котором клонированный промотор отвечает за синтез каталазы, обеспечивающей нейтрализацию пероксида водорода, продемонстрировал индукцию свечения, достигаемую 3,0 142
