
В работе использованы бактериальные штаммы E.coli К12, трансформированные плазмидами с сшивками рецепторных генов (FA/R, lasR от Pseudomonas aueruginosa и [ихВ Vibrio fisheri) и генов свечения (их СРАВЕ) Photorhabdus luminescens (табл. 60). Культивирование осуществляли на LBагаре (Sigma, США) с добавлением 10 мкг/мл доксициклина в течение 18 часов при 37 °С. Далее переносили в ГВ-бульон (Sigma, США) и инкубировали 90 минут при 37 °С для достижения клетками ранней экспоненциальной фазы. В качестве аутоиндукторов использованы N-butyry]-L-homoserinelactone (С4-ГСЛ), | N-(3-oxo)-hexanoyl-L-homoserinelactone (оксо-Сб-ГСЛ) и N- dodecanoy!-L-homoserinelactone (С12-ГСЛ) в диапазоне концентраций от 10° до 107 М. Рубцовая жидкость молодняка крупного рогатого скота была отобрана через фистулу и подвергнута центрифугированию при 5000 об/мин в течении 10 минут. Оценку способности подавлять активность аутоиндукторов осуществляли путем инкубации 10 мкл рубцовой жидкости с ГСЛ равного объема в течении 15 минут при 37 °С, после чего был добавлено 80 мкл суспензии соответствующего биосенсора. Измерение проводили в кинетическом режиме Ha люминометре LM-01T (Immunotech, Чехия) в течение 120 минут, а уровень свечения выражали в RLU (relative luminescent units).
| Е | Таблица 60- Использованные . | штаммыи AHL | их характеристика. |
|---|---|---|---|
| Strain | Description | detection | AHL used |
| E.coli paLior | —(MIRShi:luxCDABE Beni | yes | N-butyryl-L- tone |
| E.coli pAL102 | ПИ: № ихСОАВЕ | no | homoserinelactone N-butyryl-L- |
| E.coli PAL103 | luxR’luxl:luxCDABE | yes | N-(3-0x0)-hexanoyl-L- homoserinelactone |
| E.coli . pAL104 | luxtsluxCDABE | no | N-(3-0xo)-hexanoyl-L- homoserinelactone |
| E.coli pAL105 E.coli | fasgigs) ee UX CDABE | ues | N-dodecanoyl-L- homoserinelactone |
| pAL106 | lasi:luxCDABE й | Ate | homoserinelactone N-dodecanoyl-L- |
В дальнейшем рассчитывали ВЫ (bioluminescence index) как соотношение RLU на 120 минуте к RLU на 0 минуте. Долю ингибирования АГЛ рассчитывали по формуле:
Pele RLU oy RLUoy Экспериментальные исследования проведены в пятикратных повторах. Расчеты произведены с использованием методов вариационной статистики. Рубцовая жидкость представляет собой поликомпонентный раствор, характеризующийся кислой реакцией среды, следствие чего подавляет свечение
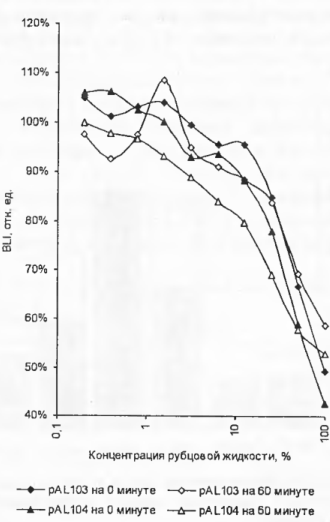
бактериальных биосенсоров, показанное ранее на примере лиофилизированной культуры рекомбинантных штаммов E.coli К12 TG1 препарата «Эколюм» (Logachev её al., 2015). Однако в настоящей работе нами был использован культивируемый штамм, характеризующийся иным уровнем восприятия внешних факторов (Deryabin et al., 2016), в связи с чем на первом этале была изучена кинетика свечения бактерий в присутствии рубцовой жидкости. Среди использованных штаммов только E.coli pAL103 и E.coli pALl04 характеризуются фоновым уровнем свечения, достаточным для аппаратной детекции его кинетики, составляющим 252 + 4 и 12440 + 218 RLU (рис.29).
an — — 100000 100000 3 eas в} | filed Е | ] р £10004 4 и В ы - i: | 100 й a 100 4| | |ВВ.й 9 | "аeseel) ве e | : hb| |8| 9aSВ , PALION РАЁЮ? pALI03. pALI04 pALIOS— рА110б Рис. 29: Диаграммы начального уровня свечения (серые столбцы), ‚ ссреднего уровня свеченияс (черные столбцы) и суммарного накопления свечения за 120 минут экспозиции (белые столбцы) использованных штаммов ЦШаммы E.coli pAL105 и E.coli pAL106, несмотря на достаточный уровень люминесценции,начального свечения,в резульс т атеч е ниемчего временисуммарныйтеряютквантсп о собностьвый выходк характеризуются гораздо меньшими значениями, чем у выше указанных рекомбинантных штаммов бактерий. Нативная рубцовая жидкость демонстрировала выраженное ингибирующее воздействие до 49 % для штамма E.coli pAL103 и 43 % для штамма E.coli pAL104 от контрольных с начала момента контакта. Однако последующая инкубация He вела к качественным изменениям параметров биолюминесценции, ак 60 минуте было зарегистрировано восстановление до 59% и 53% (рис.30). Подобная реакция связана как с особенностями окраски рубцовой жидкости, обуславливающей поглощение квантов света и, как следствие, снижение общей интенсивности люминесценции, так и острой
токсичностью, выраженной значительной ионной силой тестируемых образцов, что ведет к дестабилизации метаболических процессов бактериальной клетки и утрате в первые секунды контакта.
Разведение рубцовой жидкости ожидаемо вело к снижению описанного выше явления, причем при ее концентрации 25% и ниже эффекты тушения свечения меняются в диаметрально противоположном направлении — на первых минутах уровень свечения выше, чем на последней минуте контакта.
‘same
_
tex
90%
#
Е 80%
а
70%
oO
50%
40% 7 55 x a
5 2 8
Концентрация рубцовой жидкости, %
—+— РАЁ103Ha O минуте ~—O— pAL103на 60 минуте
—\— pAL104на 0 минуте —&— pAL104на 60 минуте
Рисунок 30: Зависимость биолюминесцентного индекса штаммов E.coli pAL103 и E.coli
Пороговой концентрацией используемой биологической жидкости, которая не проявляла значительного влияния на свечения используемых бактериальных биосенсоров, определяемое уровнем ЕС (сохранение 80% свечения от контрольных показателей) оказалась 12,5%. Таким образом, данная . концентрация рубцовой жидкости была использована в качестве ингибитора активности ацильных производных гомосеринлактона с целью исключения собственного эффекта подавления свечения, На втором этапе нами была исследована способность рубцовой жидкости осуществлять инактивацию молекул АГЛ, что регистрируется снижением интенсивности люминесцентного отклика по сравнению с пробами,
