
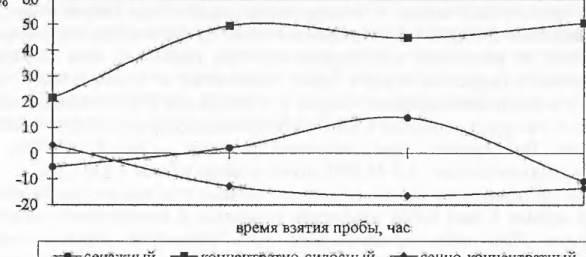
Такие временные колебания, возможно, связаны с активным включением простейших в процессы пищеварения в первые часы после поступления корма в преджелудки подопытных животных, что вероятно, объясняется созданием в этот нериод благоприятных условий для их роста и размножения микрофлоры рубца. При сенажном и концентратно-силосном типах кормления отмечается равные Ie АВEEE ane See a ait разница составляла 2,5% и 13,8%, во втором - 21,6%, 49,6%, 44,9% и 50,6% соответственно0,01). Что касаетсядо кормления,сенно-концентратногочёрез 3, 6 и 12 часов послерациона, токормлениядо кормления(Р<0,05часовА EeecELecksilt mel:at yo микрофлоры рубца бычков П-й группы над сверстниками из [-й. после кормления обнаружено превалирование числа инфузорий Ps Разница соответственно составила 14,6% (P<0,05), 19,8% (P<0,02) и 15,6%. cpнаружена сильнаяпри mnкорреляционнаяMee сенажногосвязь по количествуим простеиших,83 (P<0,05)ме: концентратно-силосного — г=0,858 (P<0,05) и сенно-концентратного — г=0,923 (P<0,05—0,02), а также установлена положительная линейная зависимость (сенажный и ‘концентратно-силосный рационы) y=168,5140,85x и Данные также свидетельствуют, что концентрация бактериальной и протозойной массы в рубцовой жидкости подопытных животных зависела, как от времени взятия проб, так и OT типа кормления. Протозойная массса, в свою очередь, находилась в прямой зависимости от количества инфузорий в рубцовой жидкости. Через 3 часа после кормления животных обеих групи величина биомассы простейших в содержимом их рубпа несколько снизилась по отношению к исходному периоду времени (до кормления)
:
ew ,
0
30
20
10
С
-20
- = -
Рис.4 - Динамика разницы количества инфузорий у бычков мясной и молочной пород
При сенажном рационе — на 12,3% и 3,9%; при концентратно-силосном — на 12,7% и 65,3% и при сенно-концентратном рационе на 1,0% и 38,8%
соответственно у 1-й и П-й группы. В этот же период биомасса бактерий была меньше биомассы инфузорий и имела более низкие значения по отношению к предыдущему периоду времени (на 3,9-150%), что, вероятно, связано с тем, что бактерии в этом случае послужили пищей для простейших. В нашем примере, о снижении численности бактерий мы судим по изменению их биомассы. Через 6 часов после кормления отмечается дальнейшее снижение биомассы простейших при концентратно-силосном и сенно-концентратном рационах, величины которых к этому времени были минимальными. В этот же период у подопытных бычков 1-й и П-й группы происходит увеличение биомассы бактерий: соответственно при сенажном рационе — на 0,08 и 0,13 r\100 мл, при концентратно-силосном ~ на 0,24 и 0,06 г\100 мл рубповой жидкости. При скармливании сенно-концентратного рациона, у молодняка обеих пород, наблюдается дальнейшее снижение биомассы простейших. Через 12 часов после кормления продолжается наращивание биомассы бактерий (на 0,03-0,18 г/100мл.) при скармливании всех трёх рационов, в TO время как накопление протозойной биомассы лишь при концентратносилосном и сенно-концентратном рационах. Так как микроорганизмы рубца кроме расщепления питательных веществ корма участвуют и в процессах синтеза микробиального белка, большой практический интерес представляет сравнительное изучение кониентрации общего азота в образцах сухой массы простейших и бактерий рубновой жидкости с учётом типа кормления и породного фактора. Концентрация азота в инфузорной массе имела более низкие значения, чем в бактериальной во всех трёх рационах кормления (табл.6). В зависимости от времени взятия проб рубцовой жидкости обнаружены почасовые колебания концентрации общего При этом в концентратно-силосном и сенно-концентратном рационах в первые 3 часа после кормления отмечалось уменьшение концентрации общего азота в протозойной массе, с последующим повышением (через 6 часов) и выравниванием значений этого показателя через 12 часов после кормления, по отношению к исходному (до кормления). При сенажном типе кормления уменьшение содержания общего азота отмечается в течение всего 12-ти часового периода исследований. Однако его показатели в протозойной массе у животных [-й группы в первые 3 часа после кормления превосходили таковые у животных П-й группы: при сенажном рационе — на 2,3-13,18%, при концентратно-силосном - 5,4-45,04%, сенно-концентратном - 4,5-7,5%. Для бактериальной массы характерно уменьшение концентрации общего азота в первые 3 часа после кормления сенажным и концентратно-силосным рапионами. При сенно-концентратном типе кормления такое снижение наблюдали в первые 6 часов после кормления, с последующим повышением. Кроме того в данном случае отмечается некоторая тенденция к превалированию содержания общего азота у герефордов над сверстниками красной степной породы. Сравнивая средние данные общего азота бактерий и простейших за 12-ти часовой период исследований, следует отметить, что 38
наибольшей концентрации в обеих группах они достигали при сенноконцентратном типе кормления (6,7-7,1 ммоль/л), затем сенажном (6,2-6,9 ммоль/л) и концентратно-силосном (6,0-6,4 ммоль/л).
7
Таблица 6 — Общий азот микроорганизмов рубца животных
| Тип кормления | |||||||
|---|---|---|---|---|---|---|---|
| Время Eeeant | Группа | концентратно- силосный | концентратный | ||||
| пробы, | |||||||
| У | ших | й | ших | бактери ii | ших | бактери i | |
| nO кормле | +0,11 | +0,12 | #0,11 | 7,14 +0,21 | +0,12 | +0,21 | |
| HHA | +0,21 | 6,8 +0,22 | =0,17 | =0,18 | 6,51 +0,17 | 6,67 +0,11 | |
| 3 | £0,24 | 6,45 £0,12 | +0,12 | £0,14 | +0,21 | 6,95 =0,13 | |
| =0,09 | =0,09 | =0,17 | =0,13 | 6,16 =0,10 | 6,43 +0,14 | ||
| +0,10 | +0,19 | +0,12 | =0,09 | 6,58 +0,12 | 6,72 +0,21 | ||
| +0,11 | +0,17 | +0,18 | +0,11 | 6,86 +0,21 | 6,22 +0,09 | ||
| 12 | +0,13 | +0,15 | +0,09 | +0,16 | 7,0 0,15 | 7,39 +0,14 | |
| £0,33 | +0,20 | +0,10 | 40,12 | +0,11 | +£0,21 | ||
Зная значения конечного продукта распада протеина корма (аммонийный азот), а также почасовые изменения общего азота в простейших и бактериях, позволило нам установить динамическое перераспределение азота рубцовой жидкости между элементами трофической цепи животных. В частности, при скармливании сенажного рациона отмечалось перераспределение азота к 12 часовому периоду в сторону бактерий рубца (рис. 5 — 7).
