
Таблица 18
Уровень антител к вирусу ПГ-3
в зависимости от исходного иммунного статуса, log2
| Препарат | Уровень антител | Ср. исход. титр | Дни после введения | ||
|---|---|---|---|---|---|
| 10 | 20 | 40 | |||
| Т-активин | >3,0 | 3,5±0,7 | 2,8±0,4 | 5,0±0,9 | 5,8±0,8 |
| <3,0 | 2,3±0,3 | 1,0±0,2 | 4,8±0,6 | 5,2±0,7 | |
| общий | 2,6±0,4 | 1,6±0,1 | 4,9±0,4 | 5,5±0,3 | |
| Паравак | >3,0 | 4,6±0,4 | 4,2±0,2 | 5,0±0,2 | 3,6±0,3 |
| <3,0 | 1,0±0,1 | 1,4±0,2 | 5,6±0,4 | 4,0±0,5 | |
| общий | 2,2±0,6 | 2,4±0,5 | 5,4±0,2 | 3,8±0,6 | |
| Т-активин+ Паравак | >3,0 | 3,6±0,4 | 1,2±0,3 | 6,0±0,8 | 3,0±0,2 |
| <3,0 | 1,6±0,1 | 0,9±0,1 | 5,6±0,7 | 2,5±0,3 | |
| общий | 2,1±0,3 | 1,0±0,2 | 5,8±0,6 | 2,7±0,2 | |
| Контроль | >3,0 | 3,2±0,5 | 1,3±0,4 | 2,8±0,3 | 3,0±0,7 |
| <3,0 | 2,0±0,3 | 0,8±0,1 | 2,6±0,1 | 1,2±0,1 | |
| общий | 2,2±0,3 | 1,0±0,1 | 2,4±0,5 | 2,0±0,2 | |
При совместном применении препаратов происходило повышение титров антител в обеих группах до 6,0 и 5,6 lg через 20 дней после введения. У контрольных телят отмечали постепенное понижение содержания антител в сыворотке крови, изменения были менее выраженными по сравнению с телятами опытных групп. Общий уровень антител при 3-кратном введении Т-активина значительно снизился и составил через 10 дней 1,6, через следующие 10 дней резко возрос до 4,9 lg.
В дальнейшем уровень их продолжал увеличиваться и равнялся 5,5 lg на 40-й день после введения. У всех привитых вакциной «Паравак» животных титры антител в РТГА незначительно поднялись (от 2,2 до 2,4 lg). Затем рост антител был более интенсивным и на 20-й день после введения составил 5,4 lg, а через 40 дней отмечалось снижение количества их до 3,8 lg. В 3-й группе при сочетанном применении Т-активина и вакцины общий уровень парагриппозных антител через 10 дней снизился с 2,1 до 1,0, а затем повысился до 5,8 и к концу уменьшился до 2,7 lg. В контрольной группе телят отмечались аналогичные изменения в общем иммунном ответе, однако колебания уровня антител у них были менее выраженными. Различия между 1, 2, 3-й и контрольной группами статистически достоверны (Р<0,001).
Изучение динамики белковых фракций сыворотки крови при введении животным иммуномодуляторов и вакцины представляет определенный интерес. При электрофорезе сыворотки крови телят,
обработанных Т-активином и вакциной, получены результаты, представленные в таблице 19.
Таблица 19
Влияние Т-активина и вакцины «Паравак» на белковый состав сыворотки крови телят, г/л
| Препарат | Показатель | Сроки исследования, дней | |||
|---|---|---|---|---|---|
| Исходные | 10 | 20 | 40 | ||
| Т-активин | Альбумины | 21,9±0,9 | 20,5±1,5 | 16,7+2,8 | 20,3±0,3 |
| α -глобулины | 14,3±2,5 | 14,4±2,5 | 19,9±0,7 | 19,0±0,8 | |
| β -глобулины | 12,3±0,7 | 7,7±0,4 | 9,8±2,5 | 14,7 ±0,5 | |
| γ -глобулины | 17,0±1,0 | 16,7±1,0 | 16,6±1,8 | 18,8±1,1 | |
| Паравак | Альбумины | 22,3±1,3 | 22,4±0,7 | 21,3±1,5 | 22,5±1,2 |
| α-глобулины | 12,3±0,7 | 14,3±0,8 | 14,5±0,7 | 19,0±0,8 | |
| β-глобулины | 8,2±1,0 | 10,3±0,9 | 9,9±0,7 | 15,2±1,0 | |
| γ-глобулины | 16,3±1,1 | 16,7±1,0 | 18,6±2,2 | 19,0±1,0 | |
| Т-активин+ паравак | Альбумины | 21,0±5,6 | 21,5±2,3 | 20,8±2,1 | 19,2±3,6 |
| α-глобулины | 12,4±3,7 | 11,2±1,3 | 16,4±2,9 | 12,5±1,7 | |
| β-глобулины | 8,2±1,8 | 9,8±2,1 | 9,2±1,9 | 10,9±2,5 | |
| γ- глобулины | 16,2±2,4 | 16,4±1,4 | 19,6±1,5 | 20,6±1,4 | |
| Контроль | Альбумины | 20,2±1,3 | 19,7±2,6 | 22,2±4,2 | 18,3±1,1 |
| α-глобулины | 12,0±0,9 | 13,7±1,8 | 11,6±1,6 | 11,2±1,2 | |
| β-глобулины | 9,6±0,1 | 7,7±0,4 | 10,7±1,2 | 11,6±1,3 | |
| γ-глобулины | 18,0±0,6 | 17,0±2,0 | 16,8±1,8 | 17,1±4,5 | |
Из таблицы видно, что при введении одной вакцины отмечается незначительное повышение альбуминов, тогда как содержание - и α b- глобулинов резко возрастало. При этом уровень β -глобулинов поднялся с 16,3±1,1 до 19,0±1,0 г/л. При совместном введении вакцины «Паравак» и Т-активина наблюдали снижение уровня альбуминов, возрастание α - глобулинов на 20-й день, -глобулинов и - β γ глобулинов на 40-й день.
Альбумины сыворотки крови поддерживают постоянство объема плазмы благодаря созданию осмотического эффекта. Транспортная функция их заключается в обратимом соединении с молекулами многих веществ и лекарств. Особенно прочно они связывают молекулы, содержащие катионную или анионную группу с неполярным остатком.
Гамма-глобулины являются большей частью специфическими антителами к различным возбудителям. Образование агрегатов «антиген – антитело» обычно сопровождается последовательным осаждением на них альфа- и бетаглобулинов, которые все вместе образу-
ют комплемент. Активация комплемента включает каскад защитновосстановительных процессов в организме, составляющих воспалительную реакцию организма. Поскольку комплементарная активность сыворотки крови находится в прямой зависимости от альфа- и бетаглобулинов, можно считать, что уровень неспецифической иммунологической реактивности также повышается при применении препаратов.
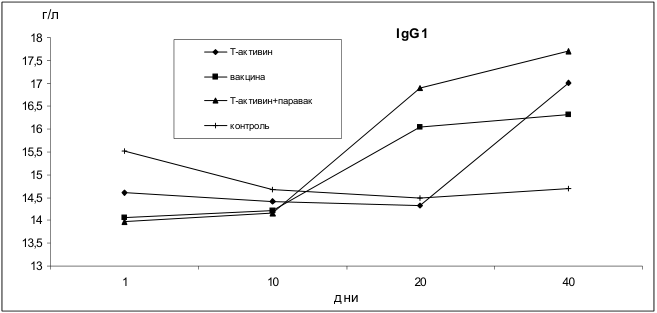
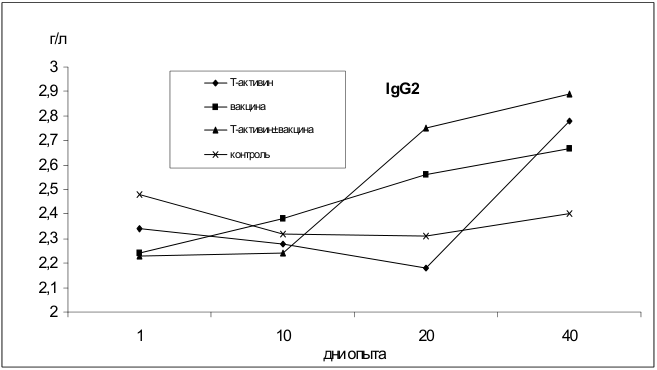
При электрофорезе сывороток телят в агарозном носителе фракция -глобулинов четко подразделяется на 2 подфракции, которые в γ соответствии с номенклатурой иммуноглобулинов следует считать подклассами IgG1 и IgG2, составляющими большую часть всех (90 – 95%) иммуноглобулинов сыворотки крови. Нами изучена динамика этих подклассов иммуноглобулинов у телят при введении препаратов (табл. 20).
Таблица 20
Динамика подклассов иммуноглобулина G при иммуномодуляции, г/л
| Группа | Под- класс | Исходные данные | Дни после введения | ||
|---|---|---|---|---|---|
| 10 | 20 | 40 | |||
| Т-активин | G1 | 14,6±1,50 | 14,42±1,82 | 14,32±1,43 | 17,02±0,73 |
| G2 | 2,34±0,15 | 2,28±0,61 | 2,18±0,62 | 2,78±0,21 | |
| Вакцина | G1 | 14,06±2,31 | 14,22±1,06 | 16,04±2,07 | 16,33±3,87 |
| G2 | 2,24±0,40 | 2,38±0,27 | 2,56±0,44 | 2,67±0,54 | |
| Т-активин+ вакцина | G1 | 13,97±2,34 | 14,16±1,30 | 16,90±2,67 | 17,71±3,55 |
| G2 | 2,23±0,34 | 2,24±0,55 | 2,75±0,28 | 2,89±0,48 | |
| Контроль | G1 | 15,52±1,07 | 14,68±1,10 | 14,49±2,91 | 14,70±1,51 |
| G2 | 2,48±0,45 | 2,32±0,35 | 2,31±0,85 | 2,40±0,26 | |
Как видно из таблицы, уровень иммуноглобулинов IgG1 и IgG2 у обработанных раздельно Т-активином телят постепенно снижался, а затем резко повысился и составил на 40-й день после введения 17,02 ±0,73 и 2,78±0,21 г/л соответственно. У привитых вакциной «Паравак» телят отмечали повышение уровня их с 14,06±2,31 до 16,33±3,87 г/л. При сочетанном применении препаратов повышение их было более выраженным и составило через 40 дней после введения 17,71±3,55 и 2,89±0,48 г/л соответственно. В контрольной группе отмечалось незначительное снижение иммуноглобулинов обоих подклассов.
На рисунках 3 и 4 представлена динамика подклассов иммуноглобулинов у телят в зависимости от введения препаратов. Полученные данные по определению общего белка и фракций сыворотки крови, основного и наиболее многочисленного класса иммуноглобулинов и его подклассов у телят при иммунизации их вакциной «Паравак» и иммуномодулятором Т-активином свидетельствуют о значительной иммунобиологической перестройке организма животных.
г/л
18 IgG1
Т-активин
17,5
17 вакцина
16,5 Т-активин+паравак
16 контроль
15,5
15
14,5
14
13,5
13
1 10 20 40
дни
г/л
3
2,9 Т-активин IgG2
2,8 вакцина
Т-активин±вакцина
2,7
контроль
2,6
2,5
2,4
2,3
2,2
2,1
2
1 10 20 40
дни опыта
Рис. 4. Изменение уровня иммуноглобулинов G2 в сыворотке крови телят
13. Серопрофилактика
Вакцинопрофилактика респираторных инфекций имеет ряд недостатков. Я.Н. Меншик и др. (1979), Gale (1973) считают, что успешная специфическая профилактика респираторных заболеваний сомнительна из-за комплексной этиологии и наличия значительного числа патогенных агентов. В настоящее время ставится вопрос о переоценке преимуществ комбинированных вакцин. Показания к их применению должны основываться на точном знании роли каждого вируса в этиологии. Набор антигенов в сложной вакцине должен соответствовать спектру циркулирующих возбудителей. В то же время этот спектр не бывает однородным и может изменяться в одном и том же хозяйстве (Крюков, 1982).
Анализ литературных данных показывает, что особое место в этиопатогенезе респираторных заболеваний принадлежит иммунологической реактивности организма животных. По мнению К.Г. Уманского (1980), фактором, ведущим к заболеванию, служит снижение иммунитета, поскольку наличие вирусов у животных не предопределяет болезнь, а наличие дефекта иммунной системы – предопределяет. Известно, что при недостаточном или позднем вскармливании молозивом новорожденных телят развивается гипогаммаглобулинемия. Молодняк с низким уровнем колострального иммунитета более подвержен болезням (Асалханов,1980; Балашенко и др., 1967; Воловенко,1975; Костына, 1984; Немченко, 1979, 1983; Ницмане и др., 1978; Федоров и др., 1983; Чекишев, 1978, 1980, 1983, 1984; Чуйкин, 1972; Fey et al., 1961; Gay et al., 1965; Roth et al., 1975).
С молозивом в организм теленка поступают иммуноглобулины, комплемент, лактоферрины, трансферрины, Т- и В-лимфоциты, ферменты трипсин, лактаза, витамины и др. (Rotter et al., 1983). При этом иммунитет, полученный колостральным путем, является ограниченным во времени. В.М. Чекишев (1983) считает, что наиболее высокая концентрация пассивно приобретенных иммуноглобулинов в сыворотке крови бывает в течение первых 48 часов. Затем темп их катаболизма значительно превалирует над аутосинтезом, и в возрасте 1 – 2 месяцев у телят обнаруживают гипогамма-глобулинемию. Как правило, заболевают телята с невысоким уровнем антител.
По данным Ф. Хорш (1981), минимальный уровень антител отмечается у телят в возрасте 40 – 45 дней. Он считает, что концентрация антител в сыворотке крови зависит от первоначального уровня
колостральных иммуноглобулинов, постнатальных изменений объема крови и скорости распада иммунных белков. По данным Э.А. Чуйкина (1972), И.Н. Тэрыце (1974,1975), количество иммуноглобулинов у телят постепенно снижается к 2 – 3-месячному возрасту. Это является одной из причин восприимчивости телят к респираторным болезням.
Результаты исследований А.Н. Егорова (1966) показывают, что резкое снижение гамма-глобулинов происходит у телят в возрасте 2 месяцев. Очевидно, сроки наступления физиологического иммунодефицитного состояния могут сильно варьировать. Например, Х. Арнаудов и др. (1982) полагают, что содержание колостральных антител у телят исчерпывается уже через 10 дней после рождения. Р.Х. Хамдеев (1983) установил, что наименьшая концентрация гамма-глобулинов регистрируется у телят в возрасте 52 дня. Е.А. Драгомир (1986) при исследовании телят через каждые 5 дней до 35-дневного возраста отметил неуклонное их возрастание. Л. Сланина и др. (1982) считают, что минимум их отмечается в 3-недельном возрасте.
Выявление животных с пониженной концентрацией иммуноглобулинов имеет большое практическое значение. Однако по мнению Greene и др.(1984) уровень гамма-глобулинов у отдельных телят не является показателем жизнеспособности, хотя наибольшая смертность наблюдается в группах с низким содержанием их. Для коррекции иммунодефицитных состояний Hastings (1979) и А. Налетовски (1982) считают более целесообразным применение консервированного молозива и сывороточных препаратов без учета спектра специфических антител.
В связи с обнаружением корреляции между уровнем общего белка сыворотки крови и иммуноглобулинов Reid и др. (1975), Frerking (1980), В.М. Чекишев (1980) предложили рефрактометрический метод оценки иммунного статуса. С целью частичной компенсации дефицита иммуноглобулинов телятам с пониженным показателем общего белка рекомендовано введение неспецифического глобулина. При этом нам удалось сократить заболеваемость более чем в 4 раза, падеж – в 6 раз.
Большинством ученых показана эффективность пассивной иммунизации при респираторных заболеваниях (Урбан,1968; Андреев и др., 1973; Ветра и др., 1972; Грязин и др., 1983; Иванов и др., 1984; Кис и др., 1981; Кленина, 1971; Цветков и др., 1979; Чекишев и др.,
