
новить синтез, “дождаться” поступления нужной аминокислоты и затем продолжить построение.
В данный момент времени может быть синтезировано столько белка, сколько позволяет наличие каждой из отдельных аминокислот и объём синтеза будет лимитирован самой дефицитной из них. Обычно первыми лимитирующими аминокислотами для дойных коров являются незаменимые аминокислоты метионин, треонин и лизин.
Молочный сахар — лактоза синтезируется исключительно тканями молочной железы. Предшественниками обеих составляющих дисахарида лактозы (глюкозыи галактозы) является глюкоза крови. Попадая в клетки вымени часть глюкозы превращается в активную галактозу и после этого происходит соединение глюкозы и галактозы с образованием лактозы.
Молочная железа поглощает глюкозу из крови в объёме, равном 20 мг на каждые 100 мл протекающей через вымя крови. Это составляет 1/3 от исходного количества глюкозы в крови. Однако если бы синтез молочного сахара целиком обеспечивался только за счёт глюкозы крови, он был бы на 20% ниже фактического уровня его образования в вымени. Это означает, что глюкоза вымени синтезируется и благодаря некоторым другим предшественникам молока, поступающим из крови. В частности, ими являются пропионовая кислота и глицерин. В сущности, они и обеспечивают недостающий синтез (около 20%) общего уровня образования лактозы.
Молочный жир. От 50% А.А.Алиев (1980), до 75% J.R.Campbell (1975) молочного жира синтезируется в вымени коров из уксусной и масляной кислот, поступающих из крови. Остальные 2550% являются продуктами жировых веществ крови — триглицеридов и неэтерифицированых жирных кислот (НЭЖК).
Кроткоцепочные жирные кислоты (С4-С10) синтезируются только из уксусной и масляной кислот. Жирные кислоты со средним числом атомов углерода (С12-С16) образуются в равной степени из этих же кислот и из триглицеридов плазмы крови, а высокомолекулярные ЖК молока (С18-С18:1) поступают в молочную железу исключительно за счёт диффузии триглицеридв и НЭЖК плазмы крови.
Вымя задерживает более 80% поступающего к нему с кровью ацетата (уксусной кислоты). Такой объём уксусной кислоты необходим для образования жирных кислот молока.
Как только уровень уксуснокислого брожения начинает преобладать в рубце (что отчётливо фиксируется при увеличении скармливания сена) концентрация ацетата в крови пропорционально возрастает, что, в конечном счёте, увеличивает жирность молока.
Минеральные вещества и витамины извлекаются из крови и поступают в молочную железу путём фильтрации. Отдельные элементы, например кальций и фосфор, молочная железа концентрирует, поднимая их абсолютный уровень в молоке на величину, превышающую конценрациюв кровив 10 раз. Уровень витаминов группы В в молоке характеризуется стабильностью, в силу собственного синтеза организмом этих веществ, а вот конценрация жирорастворимых витаминов А, Д, Е целиком зависит от их количества в рационе и запасов в теле. Общая схема использования предшественников молока из крови коровы показана на рисунке 19.
Предшественники молока это лишь часть метаболитов крови, поступивших в неё из желудочно-кишечного тракта, а также в результате использования запасов тела. Другая часть этих веществ будет расходована для роста плода (если корова стельна), отложения нового запаса питательных веществ в тканях (во вторую и последнюю треть лактации; в сухостойный период), а также в качестве источника энергии.
Особенности использования отдельных метаболитов крови можно уяснить на примере приведённом А.А.Алиевым (1980) для коровы с суточным удоем 30 кг (табл. 28).
Из таблицы 28 видно, что биосинтетическая способность глюкозы и ацетата примерно одинакова и составляет около 50% от исходного количества, поступившего в кровь.
У пропионовой кислоты эта активность значительно выше и приближается к 79%. Можно считать, что степень участия жирных кислот хиломикронов и липопротеидов в синтетических процессах также достаточно высока, однако общий их вклад в биосинтез на фоне рубцовых метаболитов существенно ниже.
В полном физиологическом цикле жизни дойной коровы нет такого момента, в который она бы не уменьшала или, наоборот, не увеличивала собственную массу тела.
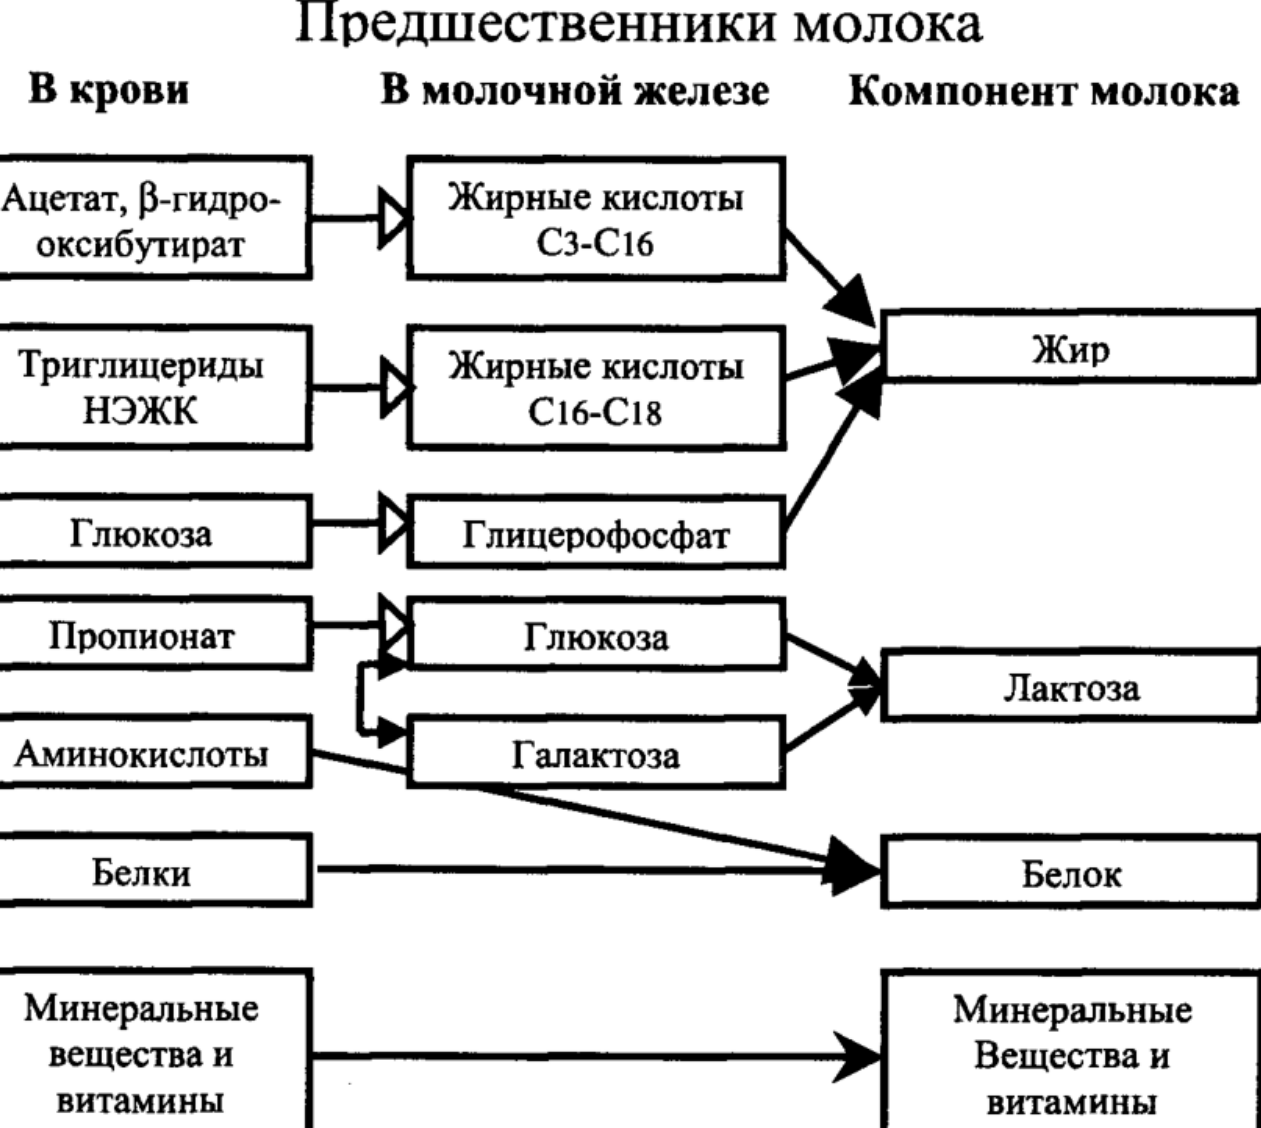
Предшественники молока
В крови В молочной железе — Компонент молока
Ацетат, В-гидро- у Жирные кислоты
оксибутират C3-C16
Триглицериды > Жирные кислоты v4Kip |
HOKK C16-C18
4
Йпою|
a
Минеральные Минеральные
вещества и Вещества и
витамины витамины
Таблица 28
Уровень обмена (г/сут) и использование метаболитов (г/сут) у коровы с суточным удоем 30 кг.
| Суточный | |||
|---|---|---|---|
| Метаболит | уровень обмена | биосинтеза (молоко+ масса тела, | — получения энергии |
| Глюкоза | 3220 | 1620 | 1600 |
| 'Ацетат | 4000 | 2030 | 1970 |
| Пропионат | 2005 | 1630 | 435 |
| Бутират+кетоновые тела | 1020 | 325 | 695 |
| ЖК хиломикронов | 260 | 210 | 50 |
| ЖК липопротеидов | 680 | 500 | 180 |
