
Оценка генотина животного при отборе проводится тремя способами: по его фепотипу, по фенотипу его предков и близких родственников, по фенотипу его потомства. В племенной работе эти оценки не взаимоисключают, а дополняют друг друга. Следовательно, опсиьи генотипа, какими бы методами она не опрсделялась, проволится по фенотипу. Тем не менее при сложности наследования хозяйственно полезных признаков животных фенотип не всегда и не в полной мере отражает наследственные свойства животного, его генотип. И нередко даже выдающиеся по продуктивным качествам животные дают весьма посредственное потометво. Практика племенной работы показывает, что весьма нелегко сохранить в потомстве качества особо ценных родителей, так как влияние их как бы нейтрализуется действием наследственных факторов других менее ценных предков. Еще в конце прошлого века Ф. Гальтон, изучая статистическим методом явления наследственности, установил, что закономерным характером наследования качества родителей является тенденция возврата к средним показателям. Сущность этой закономерности состоит в том, что у лучших родителей дети оказываются несколько хуже их, а у худших— несколько лучше. Такое явление назвали законом регрессии (или закон Гальтона), который нашел подтверждение во многих более поздних исследованиях. Причем полного возврата к средним показателям стада (популяции) обычно не наблюдается, и степень регрессии бывает различной. у
Изучая наследование молочной продуктивности у коров красной датской породы по материалам ТУ и V томов племенной книги, О. В. Гаркави установил следующие закономерности. Оказалось, что дочери от лучших по продуктивиости матерей имели удон ниже их, но выше по сравнению с коровами всей группы. А дочери от худших матерей, превышая их продуктивность, имели удон ниже, чем в среднем по всей группе. Аналогичное явление наблюдал Е. А. Новиков, изучая наследование содержания жира в молоке коров бурой латвийской породы.
Описанные особенности наследования величины удоя и жирности молока наглядно показывают, что если оставлять для размножения (на племя) только потомков лучшей части стада, то в среднем каждое новое поколение будет лучше предыдущего по тем признакам и свойствам, по которым ведется отбор. Чем интенсивнее идет отбор в одном и TOM же направлении, тем в большей степени стадо или порода насыщается наследственными задатками лучших предков и средние показатели каждого нового поколения сдвигаются в лучшую сторону, обеспечивая непрерывное совершенствованис животных. Следовательно, от интенсивности отбора зависит степень возврата к среднему, и чем эта степень меньше, чем выше эффективность селекции.
ЛУЧШИЕ rw ~ ~~ ~N < — < ~
= ~ № ~
8 > ~ . < > -
= > : и
58 a a“
RE СРЕДНЯЯ i _ — zw
ЗЕ ПО СТАД ra
ЕН 71-7 р
ES “7 =
- .
ХУДШИЕ-
--_ oe
--
ЛУЧШИЕ~ - -^ - ем
srЕ - _-=
as =-
ЗЕРН СРЕДНЯЯnocrany ne eeeneeieieniaion“7
.ВЕ —7=7
ac=
ХУДШИЕ
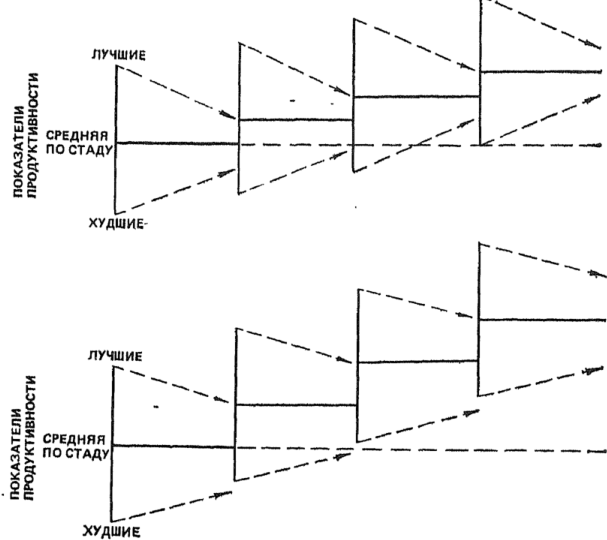
Рис. 35. Сдвиг средних показателей продуктивности стада со сменой поколения, отбором лучших животных при разной степени регрессии
Несмотря на закономерное действие регрессии, отбор лучших по селекционным признакам животных не остается безрезультатным, обеспечивая сдвиг средних показателей стада со сменой поколений, и тем в большей мерс, чем интенсивнее идет отбор. Схематично это показано на рис. 35.
При использовании массового отбора прогресс любого стада зависит от того, какая часть или в какой степени высокие продуктивные качества родителей будут унаследованы потомством. Поэтому практически важно установить степень надежности того, что отбором лучших животных по фенотипу будут «улавливаться» и лучшие генотипы.
Выявление доли влияния генотипа родителей на количественный признак потомства было начато работами С. Райта и затем продолжено работами Р. Фишера, Д. Лаша, И. Лернера, Д. Фальконера. В основу анализа фенотипической изменчивости признака были положены разработанные С. Райтом показатели корреляции между фенотипом и генотипом родителей и потомст-
PoAMTENH МЕЖДУ ГЕНОТИПОМ РОДИТЕЛЕЙ И NOTOMKAГЕНОТИП
ГЕНОТИПОМ NOTOMKA r-05
ЕZ
=Е
=e ё
ЕЕ es
ЕЕ 58
96 go
sx fe
ze ЗЕ
ГЕ5 ЗЕЗЕ
a 2
LE ue
28 ==
ПОТОМКА
РОДИТЕЛЕЙ и ФЕНОТИП
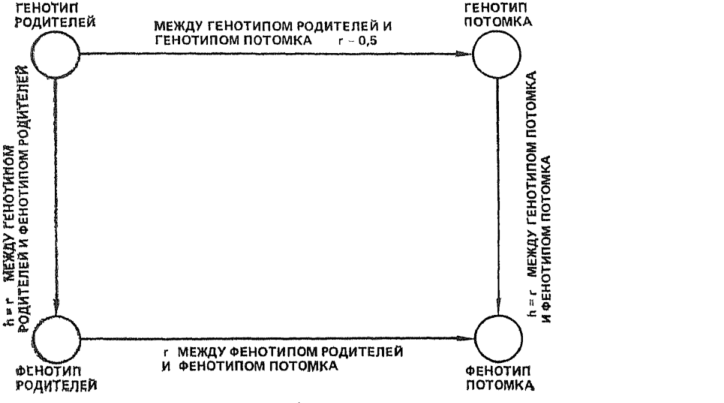
Рис. 36. Замкнутая цень коррелятивных связей между генотипами и фенотипами родителей и потомка (по Райту)
ва. Замкнутая цепь этих связей видна на рис. 36, При этом допущены теоретические предположения, что популяция находится в генетическом равновесии, количественные признаки определяются апдитивными (суммирующего действия) генами и что корреляция между генотипом родителя и генотипом потомства равпа 0,5. Величниа й — это коэффициент пути от генотипа к фенотипу. По схеме связи между генотипом и фенотипом родителей и потомка (см. рис. 36) можно получить следующее выражение корреляцин между фенотипом родителей и фенотипом потомка r=hr, между генотипом родителей и генотипом потомка r=0,5 h2, после преобразования равенства A2=2r между фенотипом родителей и фенотипом потомка. Величину #2 С. Райт назвал коэффициентом детерминации фенотипа генотипом.
Американским ученым Д. Лашем (1939) введено понятие «наследуемость признаков» и величина А? названа коэффициентом наследуемости. Используется он для определения в общей фенотнпической изменчивостн той доли, которая обусловливается наследственными различиями организма (его генотипом), Существуют разные способы вычисления коэффициента наследуемости:
1) 1?=2г между показателями. одного и того же признака родителей и потомков. Если продуктивность получают от живот-
