
PoAMTENH МЕЖДУ ГЕНОТИПОМ РОДИТЕЛЕЙ И NOTOMKAГЕНОТИП
ГЕНОТИПОМ NOTOMKA r-05
ЕZ
=Е
=e ё
ЕЕ es
ЕЕ 58
96 go
sx fe
ze ЗЕ
ГЕ5 ЗЕЗЕ
a 2
LE ue
28 ==
ПОТОМКА
РОДИТЕЛЕЙ и ФЕНОТИП
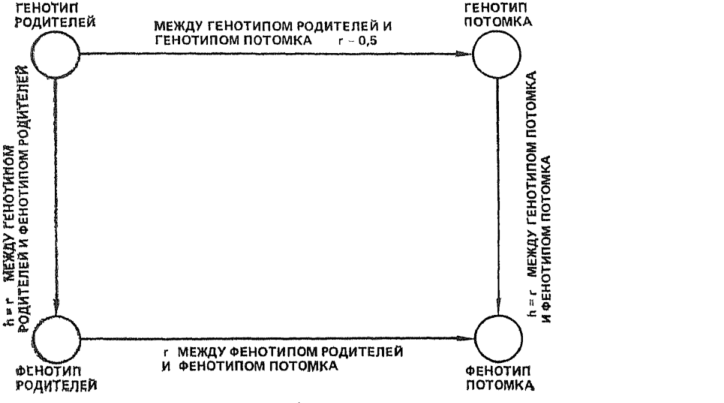
Рис. 36. Замкнутая цень коррелятивных связей между генотипами и фенотипами родителей и потомка (по Райту)
ва. Замкнутая цепь этих связей видна на рис. 36, При этом допущены теоретические предположения, что популяция находится в генетическом равновесии, количественные признаки определяются апдитивными (суммирующего действия) генами и что корреляция между генотипом родителя и генотипом потомства равпа 0,5. Величниа й — это коэффициент пути от генотипа к фенотипу. По схеме связи между генотипом и фенотипом родителей и потомка (см. рис. 36) можно получить следующее выражение корреляцин между фенотипом родителей и фенотипом потомка r=hr, между генотипом родителей и генотипом потомка r=0,5 h2, после преобразования равенства A2=2r между фенотипом родителей и фенотипом потомка. Величину #2 С. Райт назвал коэффициентом детерминации фенотипа генотипом.
Американским ученым Д. Лашем (1939) введено понятие «наследуемость признаков» и величина А? названа коэффициентом наследуемости. Используется он для определения в общей фенотнпической изменчивостн той доли, которая обусловливается наследственными различиями организма (его генотипом), Существуют разные способы вычисления коэффициента наследуемости:
1) 1?=2г между показателями. одного и того же признака родителей и потомков. Если продуктивность получают от живот-
ного только одного пола, например молочная продуктивность коров, то коэффициент наследуемости выражается удвоением коэффициента корреляции между продуктивностью матерей п дочерей (A? = 2rux).
С. А. Рузский (1977), считая, что удвоение коэффициента корреляции обычно приводит к завышению 112, а иногда и к явно ошибочным результатам, когда Л? выражается величиной, превы-. шающей единицу, предложил за коэффициент наследуемости брать коэффициент корреляции между родителями и потомством без его удвоения, то есть Л2=мд; 2) 1?=2Ю между показателями одного и того же признака родителей и потомства. Эта формула разработана Д. Лашем. По ней коэффициент наследуемости равняется удвоенному коэффициенту регрессии между показателями признака родителей и потомства; 3) Ae =, Cy где коэффициент наследуемости h? равняется отношению показа“ теля дисперсии, вызываемой генетическими факторами (Cx), к общей фенотипической дисперсии признака (Су); . 4) = ММ 9, у Мил Мих
где Mya и Mux— средние показатели лучших и худших матерей по сравнению со средним по стаду; Mua и Max— средние показатели того же признака у дочерей, полученных от лучших (л} и’ худших (х) матерей.
Предлагались и другие методы вычисления коэффициента наследуемости (по корреляции между сибсами и нполусибсами, методом дисперсионного анализа и др.). Величину коэффициента наследуемости выражают в долях единицы или в процентах. Например, если по постоянству лактационной ‘кривой у коров h?=0,12, или 12 %, то это означает, что характер лактационной кривой у коров-матерей на 12% обусловлен наследственностью и в такой же мере унаследован их дочерьми. Чем выше коэффициент наследуемости тех или иных признаков, тем в большей степени изменчивость их определяется наследственными различиями и тем более эффективным будет массовый отбор по этим признакам.
В нашей стране и за рубежом широко ведутся генетико-стаз тистические исследования популяций и накоплено уже большое количество данных о степени наследуемостн самых различных селекционных признаков животных. Но при этом отмечены весь-
206
ма большие различия в показателях коэффициента наеследуемости даже одних и тех же признаков.
| Признак Коэффициент пваследуемости, My Молочный и молочно-мясной крупный рогатый скот | |
|---|---|
| Величика удоя 4 | --60 |
| Содержание в молоке: | |
| жира . 17 | 70 |
| белка 45-70 | |
| Характер лактационной кривой 10- | 30 |
| Скорость молоковыведения 15-5 | |
| Живая Мясной крупный рогатый скот | |
| масса: | |
| {PH рождении | 11-53 |
| в 12—15 месяцев 36--94 | |
| Убойный выход 25-13 | |
| Площадь «мышечного глазка» 50-73 | |
| Плодовитость коров 10 Свиной | 22 |
| . Живая масси | 0---56 |
| Длина гуловнща | 40—86 |
| Число поросят при рождении | 6—34 |
| » — COCKOB | 10—60 |
| (среднесуточный прирост | 14—77 |
| Скороспелость | 4.-30 |
| Молочкость | 12—61 |
| Толщина шиика 25- | -84 |
| Куры | |
| Яйценоскость за первый год. | 11--47 |
| Масса яиц | 33—80 |
| Выводимость | 3—20 |
| Жизнеспособность молодняка и взрослой птицы | 3--15 |
| Живая масса: | |
| взрослых кур | 50—65 |
| 2--З-месячных цыплят 25-- | 50 |
| Олеряемость цыплят в 2-месяппом возрасте 25 | -40 |
Установлено, что степень наследуемости будет тем выше, чем однородисе и стабильнее условия существования животных разных поколений, Обычно чем выше уровепь кормления животных и их продуктивность, тем больше коэффициент наследуемости. Ф. Ф. Эйснер писал: «Наследственность весгда проявляется в опкретных условиях. Вне среды — наследственность лишь абстрактпое понятце. Генотии определяст норму реакции организма на внешние условия. Меняются условия — пеизбежно меняется и порма реакции. Значит, отделять влияние наследственности OT влияния среды можно лищь с большой долей условности и лишь в ограниченных пределах колебания внешиих факторов». Иллюстрируется это примером вычисления коэффициента наследуемо-
р 207
