Данная классификация отражает процесс «эволюции» ДНК-маркеров. Первая из трех перечисленных выше групп представляет собой первое поколение ДНК-маркеров, получивших широкое распространение в 1980 годы. В 1990 годы ключевые позиции заняли ПЦР-маркеры, в 2000 годы их существенно потеснили молекулярные маркеры, основанные на использовании ДНК-чипов. В последние два-три года для анализа полиморфизма ДНК все чаще используют метод прямого секвенирования генома или его отдельных участков. К молекулярным маркерам наравне с классическими генетическими применяют термины «локус», «аллель», «доминантный», «кодоминантный». Молекулярные маркеры подразделяют на монолокусные и мультилокусные. Монолокусные маркеры наследуются чаще всего по кодоминантному типу, мультилокусные – по доминантному [20].
Маркирование полезных признаков с помощью однонуклеотидных замен у крупного рогатого скота. Поиск генетических маркеров широко ведется среди однонуклеотидных полиморфизмов − генных мутаций, обусловленных выпадением, добавкой или заменой одного нуклеотида. Маркерные SNP могут быть локализованы в пределах генов количественных признаков (генов-кандидатов) и обуславливать возникновение их аллелей с различными фенотипическими эффектами либо находиться на значительном удалении от них, но характеризоваться стабильным наследованием.
Маркерные SNP, расположенные в пределах гена-кандидата, могут оказывать различный фенотипический эффект в зависимости от локализации и характера мутации. Наибольшим эффектом обладают мутации, возникающие в областях экзонов, кодирующих аминокислотную последовательность белка, и приводящие к изменению его первичной структуры. В большинстве случаев мутации, приводящие к изменению в структуре белка или влияющие на интенсивность его экспрессии, фенотипически проявляются в виде различных патологий. В некоторых случаях измененный белок оказывается более эффективным, так как интенсифицирует обмен веществ и предоставляет его обладателю эволюционные преимущества, в случае, если это дикий вид, и селекционные преимущества, если это искусственно разводимый сорт или порода. Однонуклеотидные замены, возникающие в периферических зонах, могут затрагивать последовательности регуляторных элементов гена и таким образом изменять эффективность его экспрессии. Мутации, возникающие в областях интронов – участков, вырезаемых в ходе посттрансляционных модификаций, чаще являются молчащими. Однако в тех случаях, когда интроны содержат регуляторные области, а также области альтернативного сплайсинга, нуклеотидные последовательности, находящиеся внутри интронов, участвуют в активации или репрессии работы гена, либо в посттрансляционных модификациях белка. В таком случае изменения нуклеотидной последовательности этих районов могут производить значительный фенотипический эффект.
Мутации, приводящие к возникновению аллелей генов, участвующих в формировании хозяйственно-полезных признаков, используются для поиска прямых ассоциаций с признаками продуктивности сельскохозяйственных животных [23 - 28].
Прежде чем внедрить использование генетических маркеров в селекцию животных, необходимо выполнить ряд мероприятий, таких как:
1) выделить спектр генов-кандидатов, которые могут служить молекулярно-генетическими маркерами QTL;
2) разработать тест-системы для анализа их аллельного полиморфизма;
3) определить частоты встречаемости аллельных вариантов данных генов у различных пород сельскохозяйственных животных;
4) провести корреляционные исследования;
5) оценить эффективность использования генетических маркеров в селекции.
Контрольные вопросы:
- В каком случае гены могут использоваться в качестве генетических
маркеров?
-
Что такое SNP?
-
Преимущества ДНК-маркеров
-
Для чего используют маркерные гены?
-
По какому принципу классифицируют ДНК-маркеры?
1.2 Генетическое маркирование признаков молочной продуктивности
В качестве общепринятых генов-маркеров молочной продуктивности коров выделяют гены, принимающие участие в контроле качественного состава молока: ген капа-казеина ( bCSN3 ), ген лактоглобулина ( bLGB ) и α- лактальбумина ( bα-LA ), а также гены, контролирующие количественные характеристики молочной продуктивности, такие как удой, жирномолочность и белковомолочность: ген гипофизарного фактора роста-1 ( bPit-1 ), ген гормона роста ( bGH ), ген рецептора гормона роста ( bGHR ) и пролактина ( bPRL ), а также ген инсулиноподобного фактора роста-1 ( bIGF-1 ) и другие.
1.2.1 Полиморфизм гена каппа-казеина bCSN3
Казеины (от лат. caseus – сыр) составляют 80% от всех белков молока и относятся к наиболее ценным пищевым белкам, в состав которых входит полный набор незаменимых аминокислот. Кроме того, казеины являются источником пищевого кальция и фосфора [29]. У крупного рогатого скота известно четыре основных типа казеинов – αS1, αS2, β и κ. В молоке они
присутствуют в форме кальций-фосфатных мицелл (тончайших нитей), в стабилизации которых решающую роль играет каппа-казеин (κ-казеин). Это единственный белок, на который действует сычужный фермент [30].
В 1972 году была расшифрована полная первичная аминокислотная структура белка каппа-казеина коровы, состоящая из 169 аминокислотных остатков: Asp4, Asn8, Thr15, Ser12, Ser P1, PyroGlu1, Glu12, Gln14, Pro20, Gly2, Ala14, Cys2, Val11, Met2, Ile12, Leu8, Tyr9, Phe4, Lys9, His3, Trp1, Arg5 [31]. Вычисленная молекулярная масса составила 19,037 кДа. А уже в 1988 году выделили ген каппа-казеина ( CSN 3) КРС и подробно описали его структуру.
Ген каппа-казеина ( CSN 3) находится в хромосоме 6, имеет размер 13 т.п.н. и состоит из 5 экзонов общей длиной 850 п.н. и 4-х интронов. По своей структуре он значительно отличается от остальных казеиновых генов. Все его интроны имеют относительно большую длину. Третий интрон содержит повторяющиеся последовательности типа Alu, а также полиморфные микросателлиты [32].
Следует отметить, что большая часть белок-кодирующей последовательности находится в одном большом экзоне IV, кодирующем функционально важный участок белка, расщепление которого приводит к разрушению мицеллярной структуры казеинового комплекса и створаживанию молока [33]. Полиморфизм каппа-казеина был открыт одновременно несколькими учеными [34, 35, 36]. В основе белкового полиморфизма каппа-казеина лежит генетический полиморфизм последовательности гена CSN 3. Все аминокислотные замены в последовательности белка обусловлены нуклеотидными заменами в соответствующей кодирующей протеин последовательности ДНК [37].
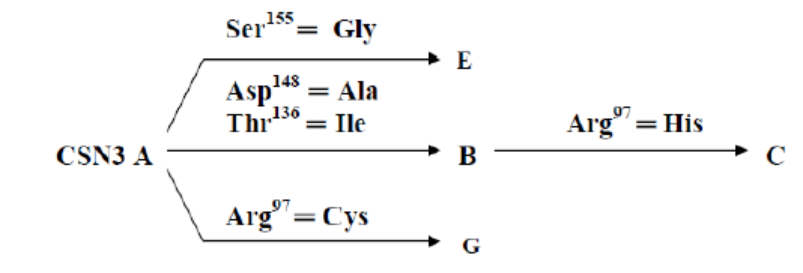
Как и другие белки молока, каппа-казеин встречается в нескольких вариантах, выявляемых посредством электрофоретического разделения казеиновой фракции в полиакриламидном геле. Причинами белкового полиморфизма являются единичные аминокислотные замены (рисунок 2), приводящие к изменению электрофоретической подвижности.