
рН ниже 3,5 происходит обратимая диссоциация мономеров, а при рН между 3,5 — 5,2 белок обратимо приобретает форму тетрамеров / октамеров [60].
Последовательность аминокислот и трехмерная структура показывают, что бета — лактоглобулин относится к группе липокалинов (англ. lipocalins) — это группа транспортных белков с характерной вторичной структурой. Они содержат восемь антипараллельных пептидных последовательностей на основе бета-складчатой структуры, которые формируют цилиндр. Такой «цилиндр» содержит внутри лиганд-связывающий участок.
Бета—лактоглобулин крупного рогатого скота связывает широкий диапазон лиганд, возможно, это-одна из причин его присутствия в молоке, обеспечивающая выполнение им физиологической роли. Он участвует в транспорте гидрофобных лиганд, регулирует ферментацию и пассивный иммунитет у новорожденных. Однако эти функции между видами различаются.
Сравнивая последовательность белков группы липокалинов, оказалось, что гликоделин, найденный в оболочке матки во время ранней беременности, наиболее схож с LGB. Гликоделин - гликопротеин с сильной иммуносупрессивной и контрацептивной активностью. Секретируемый железистым эпителием эндометрия, он может играть роль иммуномодулятора, обеспечивает защиту полуаллогенного эмбриона от иммунной атаки материнского организма [61]. Предполагают, что транспорт молекул, необходимых для развития эмбриона, из его микроокружения, влияет на дифференцировку трофобласта, регулируя его эндокринную функцию [62], играет важную роль в подготовке эмбриона к имплантации, стимулируя функциональное созревание эндометрия [63]. У многих видов животных набольшее количество бета — лакгоглобулина содержится в молочной железе во время лактации, он является источником аминокислот для новорожденных, и эта функция возникла при дупликации гена гликоделина [64].
При электрофорезе на фореграмме выделяются 6 белков сыворотки: быстрая фракция, (3-лактоглобулин, а-лактальбумин, альбумин сыворотки крови, протеозопептонная фракция, иммуноглобулин. В силу малого размера частиц сывороточных белков их количество в молоке приблизительно в 1500 раз превышает число казеиновых мицелл, хотя по массе казеина содержится в 9 раз больше, чем сывороточных белков [65]. Кроме того, тепловая обработка способствует взаимодействию денатурированных сывороточных белков с каппа-казеином казеиновых мицелл. Образующиеся комплексы влияют на технологические свойства молока — термоустойчивость и способность к сычужному свертыванию.
Ген bβLG локализован в одиннадцатой хромосоме у КРС, имеет размер 4662 п.о. и состоит из семи экзонов и шести интронов. В настоящее время известно десять генетически обусловленных аллельных вариантов гена беталактоглобулина – A, B, C, D, E, F, G, I, J, W. Наиболее часто встречаются четыре аллеля – A, B, C и D, которые отличаются друг от друга аминокислотным составом. Редкий вариант D отличается от вариантов А, В, С,
в позиции 45, имея замену аминокислоты глутаминовой кислоты на глутамин. Отличие варианта В выявляется в шестьдесят четвертой позиции, где в результате замены второго основания триплета GAT на GGT происходит замена аспаргиновой кислоты на глицин. Вариант С характеризуется заменой последнего основания в триплете CAG на CAC, что влечет за собой образование гистидина вместо глутамина в пятьдесят девятой позиции βLG. Исследование полиморфизма локуса βLG показало, что отличие аллеля А от В определяется в шестьдесят четвертой аминокислотной позиции (аспаргиновой кислоты в A, глицин в B) и в сто восемнадцатой позиции (валина в A, аланина в B).
Установлена взаимосвязь варианта В bβLG с высокими показателями молочной продуктивности и белковомолочности, что согласуется с результатами электрофоретического анализа белков молока, проведенного и описанного Braunschweig с соавторами. Полученные данные обсуждаются с точки зрения применения предложенного метода для оптимизации селекционных методов повышения частоты аллеля bβLGВ в линиях КРС. Также Braunschweig и Leeb сообщают, что у животных-носителей аллельного варианта В гена βLG отмечен низкий синтез матричной РНК и, как следствие, отсутствие экспрессии данного белка.
Благоприятный для молочной промышленности аллель В беталактоглобулина обнаруживается у большинства европейских пород крупного рогатого скота - айрширской, шортгорнской, красной датской, голштинской, в частности в большинстве скандинавских пород крупного I рогатого скота. Исследователями также обнаружены существенные различия между стадами внутри одной породы по встречаемости генотипов белков и по генным частотам аллелей. Так, по черно-пестрой породе встречаемость аллеля В колеблется от 0,345 до 0,668, аллеля А от 0,332 до 0,655 [66].
В этой связи, диагностика полиморфизма гена bβLG , в частности обнаружение ценного аллеля В гена бета-лактоглобулина у КРС и выявление племенных животных-носителей данного аллеля является основным направлением в технологии получения высококачественного низкоаллергенного молока [67].
Контрольные вопросы:
-
В каком году впервые был выделен бета-лактоглобулин?
-
Биологическая роль белка βLG.
-
Сколько описано аллельных вариантов гена βLG?
-
Какая аллель гена бета-лактоглобулина связана с высокими
показателями белковомолочности?
- Структура белка бета-лактоглобулина.
1.2.4 Полиморфизм гена пролактина ( bPRL )
Пролактин (PRL, лактогенный гормон, маммотропин, лютеотропный гормон) является одним из самых универсальных гормонов гипофиза с точки зрения его биологической функциональности. В настоящее время установлено более 100 разнообразных физиологических функций этого гормона [68]. Пролактин необходим для инициации и поддержания лактации, будучи также, в первую очередь, ответственным за синтез молочных белков, жиров, лактозы и других основных компонентов молока [69].
Пролактин является полипептидным гормоном, секретируемым главным образом передней долей гипофиза [68]. У КРС этот гормон состоит из 199 аминокислот [70]. Эксперименты по удалению гена пролактина доказали его роль в развитии молочной железы, образовании молока и экспрессии генов молочных белков [71]. Поэтому у КРС ген пролактина ( bPRL ) может являться идеальным кандидатом для анализа связи локусов количественных признаков (QTL) c показателями молочной продуктивности.
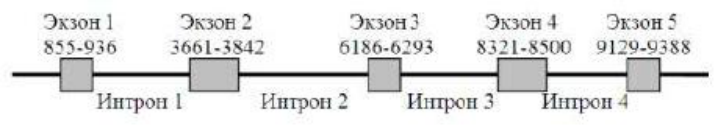
Ген bPRL локализован в области q21 хромосомы 23 и состоит из пяти экзонов и четырёх интронов (рисунок 3), протяжённостью 10 т.п.н [72]. Также установлено, что он тесно сцеплен с генами класса I и класса II главного комплекса гистосовместимости. Наиболее тесное сцепление отмечено между генами bPRL и BoLA-DRB 3 [73]. На основании анализа последовательности кДНК гена bPRL четырёх различных клонов было установлено семь возможных нуклеотидных замен. Одной из них является описанная H.A. Lewin с соавт. (1992) "молчащая" A→G замена в экзоне III гена, возникающая в кодоне для 103 аминокислоты и приводящая к появлению полиморфного Rsa I-сайта [74]. Этими же авторами впервые показано влияние данной замены у КРС на такие показатели молочной продуктивности как величина удоя, процентное содержание белка и жира в молоке. Позднее было подтверждено влияние Rsa I- полиморфизма bPRL на показатели молочной продуктивности КРС [75]. В целом работ на эту тематику было проведено достаточно много, но все они противоречивы и требуют более детального изучения.
Распределение частот генотипов и аллелей по Rsa I-полиморфизму гена bPRL у КРС изучалось многими исследователями. В частности, в исследованиях M. Sodhi et al., проведённых на 23 аборигенных породах Индии ( Bos indicus ), было выявлено преобладание гетерозиготного генотипа AB
24
