
(средняя частота 0,58) независимо от направления продуктивности и географического региона. Средняя частота гомозиготных генотипов составила 0,22 для генотипа AA и 0,20 для генотипа AB . Частоты аллельных вариантов A и B находились приблизительно на одинаковом уровне и равнялись 0,52 и 0,48, соответственно [77]. В работе A. Dybus et al. (2005), проведённой на животных чёрно-пёстрой и джерсейской пород, было установлено, что в чёрно-пёстрой породе преобладал аллель A (85,33%), в то время в джерсейской породе преобладал аллель B (69,19%). Такое различие частот аллельных вариантов определило и различия в распределениях генотипов у этих пород. Так в чёрнопёстрой породе частота генотипа AA составила 71,07%, генотипа BB – 0,42%, в джерсейской – 9,19% и 47,57%, соответственно [78]. У таких аборигенных российских пород ( Bos taurus ) как якутская, ярославская, бестужевская и костромская I.V. Lazebnaya et al. (2013) установили частоты генотипов bPRL - RsaI . Так частота генотипа AA для этих пород составила 0,561, 0,425, 0,474, 0,556, генотипа AB – 0,341, 0,442, 0,421, 0,387, генотипа BB – 0,098, 0,133, 0,105, 0,056, соответственно. При этом частота аллеля A (0,646-0,750) во всех четырёх породах превосходила частоту аллеля B (0,250-0,354) в среднем в 2-2,5 раза. В голштинской породе КРС частота аллеля A , по данным М.Е. Михайловой и Е.В. Белой (2011) находилась на уровне 89,0%, по данным P. Chrenek et al. (1998) – 95,0% [79].
Участвуя в инициации и поддержании лактации у млекопитающих, пролактин может служить потенциальным генетическим маркером молочной продуктивности КРС, а как следствие и дополнительным критерием отбора при селекции.
Гены соматотропинового каскада, такие, как ген гипофизарного фактора роста-1 ( bPit-1 ), ген гормона роста ( bGH ), ген рецептора гормона роста ( bGHR ) и ген инсулиноподобного фактора роста-1 (bIGF-1) также участвуют в регуляции процесса лактации. Ниже эта информация будет рассмотрена более подробно.
Контрольные вопросы:
-
Биологическая роль белка пролактина.
-
Где локализован ген пролактина?
-
Какой генотип гена bPRL с низкой жирностью молока у животных?
-
Ассоциацию какого полиморфизма гена пролактина исследуют с
признаками молочной продуктивности крупного рогатого скота?
- Какие еще гены участвуют в регуляции процесса лактации?
1.3 Генетическое маркирование признаков мясной продуктивности
В настоящее время в литературе имеются сообщения о нескольких маркерных генах, связанных с липидным метаболизмом и влияющих на мясные
качества крупного рогатого скота: тиреоглобулин ( bTG5 ), диацилглицерол О- ацилтрансфераза ( bDGAT ), лептин, миостатин, калпаин и калпастатин.
1.3.1 Полиморфизм гена тиреоглобулина ( bTG )
Тиреоглобулин (TG5) - гликопротеин, предшественник тироидных гормонов трийодтиронина (ТЗ) и тетрайодотиронина (Т4). Они высвобождаются в результате гидролиза йодированного тиреоглобулина и секретируются в кровь. Гормоны щитовидной железы играют важную роль в регуляции метаболизма и могут повлиять на рост, дифференциацию клеток тканей и гомеостаз жировых отложений, а также участвуют в процессах образования жировых клеток. Как известно, щитовидная железа состоит из мелких фолликул, выстланных однослойным кубовидным эпителием - тироцитами. Синтезируемый этими клетками предшественник тироидных гормонов, тиреоглобулин, поступает в просвет фолликула, где «дозревает», а затем проникает обратно в клетки. Ген гормона тиреоглобулина ранее рассматривался в качестве функционального и позиционного гена-кандидата мраморности мяса. На основании QTL исследований, проведенных на молочных породах крупного рогатого скота, а также из-за влияния этого гена на жировой метаболизм считают, что ген гормона тиреоглобулина связан с молочной продуктивностью и качественным составом молока.
Ген тиреоглобулина находится в области центромеры четырнадцатой хромосомы КРС. Он отмечен в качестве позиционального и функционального гена-кандидата QTL мраморности мяса. Тиреоглобулин (Thyroglobulin) – гликопротеин, предшественник тиреоидных гормонов трийодотиронина (T3) и тетрайодотиронина (T4), участвующих в образовании жировых клеток и формировании мраморности [80]. Ген тиреоглобулина КРС был секвенирован Parma et al. (1987), наличие различных аллелей выявлено Georges et al. (1987). Ассоциативная связь мраморности с маркером CSSM66, расположенным на четырнадцатой хромосоме КРС, показана Barendse et al. (1997). Точный механизм влияния полиморфности гена на формирование качественных признаков мясной продуктивности еще неизвестен, но установлена связь его вариантов, обусловленных SNP в 5’- нетранслируемой области гена bTG5 с мраморностью, в частности, показателем IMF в длиннейшей мышце спины [81]. Гомозиготный или гетерозиготный по дельта-тимин аллелю ( bTG5ТТ или bTG5СТ ) скот отличается более высокой мраморностью, чем гомозиготный по дельта-цитозин аллелю ( bTG5СС ). Исследования проводились в группах КРС ангусской и шортгорнской пород, результаты подтверждены также в коммерческих линиях и породе Wagyu. На рынке представлен коммерческий тест мраморности GeneSTAR®, основанный на полиморфизме гена тиреоглобулина. Апробация проведена на поголовье более трех тысяч пятисот голов КРС с учетом породы и системы кормления. Самой высокой частотой встречаемости желательного аллеля характеризуется японская порода КРС
Wagyu (76%), которая, как известно, отличается чрезвычайно высокой мраморностью мяса.
Контрольные вопросы:
- Какие гены , связанные с липидным обменом , являются маркерами
мясной продуктивности?
-
Где локализован ген тиреоглобулина?
-
С каким признаком мясной продуктивности связан ген тиреоглобулина?
-
В каком году был секвенирован ген bTG5 ?
-
Какая аллель гена тиреоглобулина положительно ассоциирована с мраморностью крупного рогатого скота?
1.3.2 Полиморфизм гена диацилглицерол О-ацилтрансферазы ( bDGAT )
Ген bDGAT 1 (Diacylglycerol O-Acyltransferase 1) кодирует фермент диацилглицерол О-ацилтрансфераза, который играет главную роль в синтезе триглицеридов. Триглицериды являются главными компонентами жира образующиеся путём связывания диацилглицерола с длинной цепью жирной кислоты ацилкоэнзима A (acyl-CoA) [82]. Фермент DGAT катализирует заключительный этап биосинтеза триглицеридов, который схематически представлен на рисунке 4.
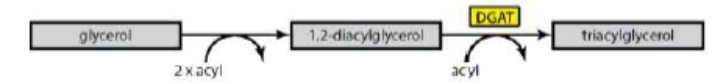
Исследования, проведённые на мышах, показали, что молочные железы самок, лишённых гена bDGAT 1, вообще не продуцировали молоко в результате нарушенного синтеза триглицеридов в молочной железе [83]. После этого наблюдения ген bDGAT 1 был предложен в качестве функционального генакандидата признаков молочной продуктивности.
Ген bDGAT 1 у КРС локализован в области центромеры хромосомы 14, содержащей также QTL, влияющий на удой и состав молока. Изменения QTL вызваны динуклеотидной заменой ApA→GpC в экзоне VIII гена bDGAT 1, приводящей к замене в белковом продукте лизина (аллель K) на аланин (аллель A) [84]. Мутация K232A в гене bDGAT 1 впервые была обнаружена R.J. Spelman с соавт. (2002), ими же было установлено, что аллельный вариант K ассоциирован с повышенным содержанием жира в молоке коров джерсейской, айрширской и голштино-фризской пород, в то время как аллельный вариант A ассоциирован с высокими удоями [85]. Аналогичные результаты были
27
