
2 Маркирование молочной и мясной продуктивности по генам соматотропинового каскада
Известно, что гормон роста и целый ряд других белков (прямо или косвенно необходимых для его функционирования) обеспечивают разнообразные молекулярные и клеточные эффекты, приводящие, в конечном счёте, к развитию и росту организма [104, 105, 108]. Эти белки составляют своеобразную ось («axis») или систему, которая запускает и контролирует совокупность метаболических процессов, ведущих к росту и связанных с клеточной дифференцировкой [104 - 106].
Функционирование системы гормона роста представляется в виде целого ряда последовательных молекулярных процессов, в которых принимают участие десятки других белков/пепт идов. Компоненты этой системы участвуют в запуске секреции гормона роста, его транспорте в кровотоке, в передаче гормонального сигнала в клетке – мишени (внутриклеточный сигналинг) и, наконец, в целенаправленных изменениях генной экспрессии в клетках – мишенях [105, 107-109]. В целом, в системе гормона роста выделяют две ветви – «основную» и «боковую» или «дополнительную», а также три специальных регуляторных звена, обусловленных действием:
1) соматолиберина (гипоталамический релизинг-фактор гормона роста или соматокрин, GHRH);
2) соматостатина (SST, SRIF);
- 3) грелина («ghrelin», GHRL).
Каждое из этих регуляторных звеньев представляет собой целую цепь молекулярных событий, влияющих на секрецию гормона роста [108]. Боковая ветвь является одним из результатов воздействия гормона роста на многие клетки – мишени, ответ которых приводит к синтезу и секреции гормоноподобого белка, получившего название инсулиноподобного фактора роста-1 (IGF-1) [104, 105, 108]. Ряд авторов, подчеркивая данное обстоятельство, включают в название системы указание на участие в ней IGF-1 – система или ось ГР/ИФР. Вместе с тем не исключается возможность и независимой от гормона роста продукции IGF-1, который может играть самостоятельную роль в регуляции клеточной пролиферации [105, 110, 111].
Центральной фигурой в системе ГР/ИФР, естественно, считают сам гормон роста, который продуцируют высокодифференцированные соматотрофные клетки гипофиза. Синтез гормона роста обеспечивает ген bGH . Установлено, что он входит в кластер из пяти родственных генов, располагающийся на сравнительно коротком участке полинуклеотидной последовательности [112]. При реализации биологических эффектов гормона роста по основной ветви особое значение принадлежит нескольким белковым продуктам одного гена, получившего название – ген рецептора гормона роста ( bGHR ). Этот ген и его продукты к настоящему времени достаточно хорошо изучены [105, 108, 113, 114]. Установлено, что ген bGHR , направляет синтез трансмембранного белка и именно этот полноразмерный продукт (зрелый белок – 620 а.о.;
31
предшественник – 638 а.о.), образуя функционально активный димер, выполняет роль рецептора гормона роста (РГР).
Индуцируемый ГР синтез ИФР-1 был обнаружен в клетках печени, в мышцах и в ряде других тканей, включая предстательную железу [105, 108, 109, 115, 116]. Согласно современным представлениям ИФР-1 функционирует в организме животных и человека не только как ростовой фактор, но выступает и в качестве эндокринного агента, секретируемого в кровоток и участвующего в нормальных и патологических процессах многих клеток – мишеней [104-106, 115].
Таким образом, регуляция синтеза гормона роста представляет собой многоуровневый каскад взаимодействий белок-рецептор, тесно связанных между собой. Нарушение, и, тем более, выпадение любого звена влечет за собой изменения в работе соматотропиновой оси, которые могут привести как к различиям в фенотипических проявлениях количественных признаков продуктивности у сельскохозяйственных животных, так и к заболеваниям, развивающимся на разных этапах онтогенеза.
Контрольные вопросы:
- Какие гены соматотропинового каскада являются перспективными
маркерами мясной и молочной продуктивности крупного рогатого скота?
-
Понятие соматотропного каскада.
-
Биологическая роль соматотропинового каскада?
-
Структура системы гормона роста.
-
Какой ген является ответственным за синтез гормона роста?
2.1 Гипофизарный фактор транскрипции
Гипофизарный фактор транскрипции (PIT-1) участвует в регуляции экспрессии генов пролактина ( bPRL ), соматотропина ( bGH ) и тиреотропного гормона, а также регулирует дифференциацию и пролиферацию клеток гипофиза в раннем эмбриогенезе и определяет развитие зон, ответственных за синтез соматотропина [117-120].
Белок PIT-1 (рисунок 5) является членом POU-домена, в который входит группа транскрипционных регуляторов, имеющих важную роль в дифференциации и пролиферации клеток [121]. POU является бинарным ДНКсвязывающим доменом [122]. Он включает два высоко консервативных региона [123]. Эти регионы ответственны за высокое сродство с ДНК генов соматотропина, пролактина и других. Ингибирование синтеза PIT-1 приводит к заметному снижению экспрессии генов пролактина и гормона роста и к значительному снижению пролиферации клеточных линий, продуцирующих эти гормоны
Белок PIT-1 состоит из двести девяносто одной аминокислоты, узнает мотив ATGNATA(A/T)(A/T) [124].
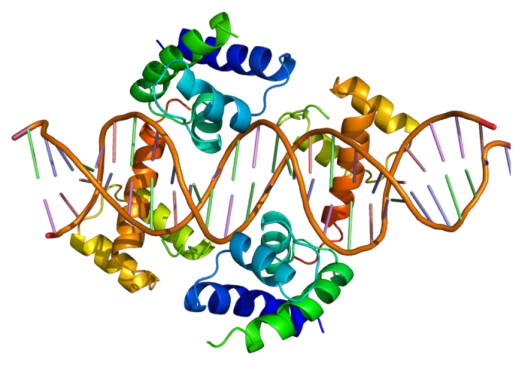
Ген bPit-1 человека больше 14 кб, расположен в локусе 3p11 [125]. Ген bPit-1 мыши локализован в шестнадцатой хромосоме [126]. Ген bPit-1 крупного рогатого скота расположен в центромерной зоне первой хромосомы между локусами TGLA57 и RM95 [127]. Мутации в гене bPit-1 приводят к гипоплазии гипофиза, синдрому врожденного гипотиреоза у мышей, а также к отсутствию соматотропина [126]. Удаление из организма гена bPit-1 приводит к эмбриональной смертности [128, 129].
У млекопитающих bPit-1 имеет три варианта сплайсинга. Основной тип, Pit-1 -α, два других – Pit-1 -β и Pit-1 -T [130, 131]. Все варианты сплайсинга являются биологически активными. Каждый из вариантов избирательно воздействует на промоторные зоны генов мишеней. Pit-1 -α активирует промоторы Pit-1 -β и Pit-1 -α. Pit-1 -β активирует промотор гена соматотропина [132]. Pit-1 Т стимулирует экспрессию TSH-β [133, 134].
Контрольные вопросы:
-
Биологическая функция гипофизарного фактора транскрипции.
-
На какой хромосоме расположен ген bPit-1 мышей?
-
Из скольких аминокислот состоит белок гипофизарного фактора
транскрипции?
- Сколько вариантов сплайсинга имеет ген гипофизарного фактора
транскрипции у млекопитающих?
- К чему приведет удаление гена bPit-1 ?
