
Мутации, приводящие к возникновению аллелей генов, участвующих в формировании хозяйственно-полезных признаков, используются для поиска прямых ассоциаций с признаками продуктивности сельскохозяйственных животных [23 - 28].
Прежде чем внедрить использование генетических маркеров в селекцию животных, необходимо выполнить ряд мероприятий, таких как:
1) выделить спектр генов-кандидатов, которые могут служить молекулярно-генетическими маркерами QTL;
2) разработать тест-системы для анализа их аллельного полиморфизма;
3) определить частоты встречаемости аллельных вариантов данных генов у различных пород сельскохозяйственных животных;
4) провести корреляционные исследования;
5) оценить эффективность использования генетических маркеров в селекции.
Контрольные вопросы:
- В каком случае гены могут использоваться в качестве генетических
маркеров?
-
Что такое SNP?
-
Преимущества ДНК-маркеров
-
Для чего используют маркерные гены?
-
По какому принципу классифицируют ДНК-маркеры?
1.2 Генетическое маркирование признаков молочной продуктивности
В качестве общепринятых генов-маркеров молочной продуктивности коров выделяют гены, принимающие участие в контроле качественного состава молока: ген капа-казеина ( bCSN3 ), ген лактоглобулина ( bLGB ) и α- лактальбумина ( bα-LA ), а также гены, контролирующие количественные характеристики молочной продуктивности, такие как удой, жирномолочность и белковомолочность: ген гипофизарного фактора роста-1 ( bPit-1 ), ген гормона роста ( bGH ), ген рецептора гормона роста ( bGHR ) и пролактина ( bPRL ), а также ген инсулиноподобного фактора роста-1 ( bIGF-1 ) и другие.
1.2.1 Полиморфизм гена каппа-казеина bCSN3
Казеины (от лат. caseus – сыр) составляют 80% от всех белков молока и относятся к наиболее ценным пищевым белкам, в состав которых входит полный набор незаменимых аминокислот. Кроме того, казеины являются источником пищевого кальция и фосфора [29]. У крупного рогатого скота известно четыре основных типа казеинов – αS1, αS2, β и κ. В молоке они
присутствуют в форме кальций-фосфатных мицелл (тончайших нитей), в стабилизации которых решающую роль играет каппа-казеин (κ-казеин). Это единственный белок, на который действует сычужный фермент [30].
В 1972 году была расшифрована полная первичная аминокислотная структура белка каппа-казеина коровы, состоящая из 169 аминокислотных остатков: Asp4, Asn8, Thr15, Ser12, Ser P1, PyroGlu1, Glu12, Gln14, Pro20, Gly2, Ala14, Cys2, Val11, Met2, Ile12, Leu8, Tyr9, Phe4, Lys9, His3, Trp1, Arg5 [31]. Вычисленная молекулярная масса составила 19,037 кДа. А уже в 1988 году выделили ген каппа-казеина ( CSN 3) КРС и подробно описали его структуру.
Ген каппа-казеина ( CSN 3) находится в хромосоме 6, имеет размер 13 т.п.н. и состоит из 5 экзонов общей длиной 850 п.н. и 4-х интронов. По своей структуре он значительно отличается от остальных казеиновых генов. Все его интроны имеют относительно большую длину. Третий интрон содержит повторяющиеся последовательности типа Alu, а также полиморфные микросателлиты [32].
Следует отметить, что большая часть белок-кодирующей последовательности находится в одном большом экзоне IV, кодирующем функционально важный участок белка, расщепление которого приводит к разрушению мицеллярной структуры казеинового комплекса и створаживанию молока [33]. Полиморфизм каппа-казеина был открыт одновременно несколькими учеными [34, 35, 36]. В основе белкового полиморфизма каппа-казеина лежит генетический полиморфизм последовательности гена CSN 3. Все аминокислотные замены в последовательности белка обусловлены нуклеотидными заменами в соответствующей кодирующей протеин последовательности ДНК [37].
Как и другие белки молока, каппа-казеин встречается в нескольких вариантах, выявляемых посредством электрофоретического разделения казеиновой фракции в полиакриламидном геле. Причинами белкового полиморфизма являются единичные аминокислотные замены (рисунок 2), приводящие к изменению электрофоретической подвижности.
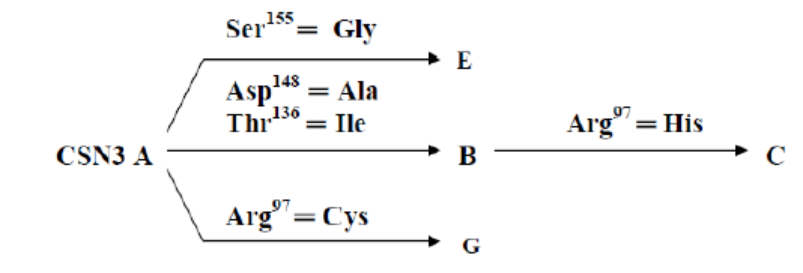
На сегодняшний день описано тринадцать генетических вариантов CSN 3: A , B , С , D , E , F , G , Az , H , X , I , A (l) и J [38]. Наиболее часто у КРС встречаются А - и В -аллельные варианты CSN 3, различающиеся двумя аминокислотными заменами в 136 (Thr→Ile) и 148 (Asp→Ala) положениях полипептидной цепи, вызванными соответствующими точковыми мутациями в позициях 5309 (С→Т) и 5345 (A→C) [39].
Генетические варианты A и B гена CSN 3 присутствуют во всех породах КРС, но с различной частотой встречаемости. Так частота B -аллеля у пород, относящихся к Bos taurus , выше и находится в диапазоне от 0,34 до 0,56 (за исключением джерсейской), по сравнению с Bos indicus , у которых частота того же аллеля колеблется от 0,07 до 0,09 [40]. Согласно данным D. Vasicek et al. (1995), аллельный вариант B представлен у голштино-фризов с частотой 0,21, у животных чёрно-пёстрой породы (немецкий тип) – 0,22, у симментальской породы – 0,56 и у пинцгау – 0,24 [41]. Данные, опубликованные в США (H. Hansen, 1990) показывают, что процент генотипов с В -аллелем гена CSN 3 для джерсейской породы составляет 80%, бурой швицкой – 65%, голштинофризской – 20% [42]. Довольно высокая частота встречаемости этого же аллеля характерна для таких российских аборигенных пород, как: калмыцкая (0,324), костромская (0,405) и ярославская (0,475) [43].
Тестирование А- и В-аллелей представляет интерес с точки зрения практики, так как молоко коров, несущих в генотипе В -аллель каппа-казеина имеет по сравнению с А -аллельным вариантом лучшую температурную устойчивость, более короткое время коагуляции, лучшую свертываемость и содержит мицеллы меньшего диаметра, что гораздо предпочтительнее для производства сыров [44].
K.F. Ng-Kwai-Hang отмечает, что в молоке коров, несущих ВВ -генотип каппа-казеина, более высокое процентное содержание белка по сравнению с АА -генотипом каппа-казеина. При производстве сыра из молока коров с генотипом ВВ каппа-казеина, время коагуляции было короче на 24%, консистенция сгустка была лучше, а выход готовой продукции на 6% больше, чем при производстве сыра из молока коров, несущих гомозиготный генотип АА [45]. Схожие результаты наблюдались в работах: A. Comin et al., 2008; Т.М. Ахметов и др., 2009; Г.А. Бадин и Б.В. Шалугин, 2011; Г.М. Гончаренко и др., 2013 [46-49].
Европейская ассоциация животноводов и ряд крупных коммерческих фирм по животноводству предложили считать ВВ генотип каппа-казеина – экономически важным селекционным критерием для пород КРС, специализированных в молочном направлении продуктивности. По сообщению А.Ш. Тинаева во многих странах мира, например, Германии, Дании, Голландии, селекция по генотипам каппа-казеина включена в программы по разведению КРС [50].
