
Wagyu (76%), которая, как известно, отличается чрезвычайно высокой мраморностью мяса.
Контрольные вопросы:
- Какие гены , связанные с липидным обменом , являются маркерами
мясной продуктивности?
-
Где локализован ген тиреоглобулина?
-
С каким признаком мясной продуктивности связан ген тиреоглобулина?
-
В каком году был секвенирован ген bTG5 ?
-
Какая аллель гена тиреоглобулина положительно ассоциирована с мраморностью крупного рогатого скота?
1.3.2 Полиморфизм гена диацилглицерол О-ацилтрансферазы ( bDGAT )
Ген bDGAT 1 (Diacylglycerol O-Acyltransferase 1) кодирует фермент диацилглицерол О-ацилтрансфераза, который играет главную роль в синтезе триглицеридов. Триглицериды являются главными компонентами жира образующиеся путём связывания диацилглицерола с длинной цепью жирной кислоты ацилкоэнзима A (acyl-CoA) [82]. Фермент DGAT катализирует заключительный этап биосинтеза триглицеридов, который схематически представлен на рисунке 4.
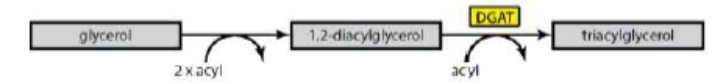
Исследования, проведённые на мышах, показали, что молочные железы самок, лишённых гена bDGAT 1, вообще не продуцировали молоко в результате нарушенного синтеза триглицеридов в молочной железе [83]. После этого наблюдения ген bDGAT 1 был предложен в качестве функционального генакандидата признаков молочной продуктивности.
Ген bDGAT 1 у КРС локализован в области центромеры хромосомы 14, содержащей также QTL, влияющий на удой и состав молока. Изменения QTL вызваны динуклеотидной заменой ApA→GpC в экзоне VIII гена bDGAT 1, приводящей к замене в белковом продукте лизина (аллель K) на аланин (аллель A) [84]. Мутация K232A в гене bDGAT 1 впервые была обнаружена R.J. Spelman с соавт. (2002), ими же было установлено, что аллельный вариант K ассоциирован с повышенным содержанием жира в молоке коров джерсейской, айрширской и голштино-фризской пород, в то время как аллельный вариант A ассоциирован с высокими удоями [85]. Аналогичные результаты были
27
получены позднее в работах: G. Thaller et al. (2003), J. Näslund et al. (2008), D. Sun et al. (2009), A. Molee et al. (2012) [86-89].
В обширных исследованиях, проведённых B. Kaupe et al. (2004), был изучен полиморфизм гена bDGAT 1 у 38 пород КРС молочного, мясного и комбинированного направления продуктивности двух подвидов Bos indicus и Bos taurus . В общей сложности было проанализировано 1748 образцов ДНК взятых у животных из 13 стран пяти континентов. Авторы обнаружили, что у пород мясного направления продуктивности частота аллеля K гена bDGAT 1 находилась на невысоком уровне (1-34%), в то время как у молочных пород частота данного аллеля колебалась от очень низкого (2%), до довольно высокого значения (69%). Породы турецкая анатолийская чёрная, южная анатолийская красная, восточная анатолийская красная и серая степная характеризовались промежуточными значениями частоты аллеля K (21- 52%). В другой работе, проведённой G. Thaller et al. (2003) было установлено, что в рассматриваемых выборках пород флеквич и немецкой голштинской частота аллельного варианта K составила 0,072 и 0,548, соответственно. В джерсейской породе частота этого же аллеля варьировала от 0,69 до 0,88 [85, 90, 91].
Имеются сведения о положительной корреляции показателей активности фермента DGAT и мраморностью мяса в длиннейшей и полусухожильной мышцах в породах голштино- фризская и каролас. По данным B.M. Sorensen et al. (2005) у животных с желательным генотипом KK активность DGAT была более чем в 5 раз выше по сравнению с таковой у животных имеющих генотипы АK и АА [92]. G. Thaller et al. (2003) и L. Pannier et al. (2010) сообщают о достоверном влиянии полиморфизма этого гена на содержание внутримышечного жира [86, 93].
Из всего выше сказанного, очевидно, что молекулярное тестирование КРС по гену bDGAT 1 позволит проводить целенаправленную селекцию для получения животных с желательными потребительскими свойствами.
Контрольные вопросы:
-
Биологическая функция диацилглицерол О-ацилтрансферазы.
-
Какая аллель гена bDGAT более высокими показателями содержания
молочного жира?
-
Где картирован ген диацилглицерол О-ацилтрансферазы?
-
Чем обусловлена мраморность мяса?
-
Какая мутация гена bDGAT влияет на мраморность мяса говядины?
1.3.3 Полиморфизм гена лептина ( bLep )
Лептин – 16-кД-гормональный продукт гена тучности, участвует в контроле питания, расхода энергии, регулировании массы тела млекопитающих, воспроизводства и определенных функций иммунной системы
28
[94]. Cинтезируется в основном в адипоцитах и при увеличении массы тела возрастает, соответственно, его периферийная концентрация [95].
Лептин является глобулярным белком, синтезируемым жировой тканью. Молекула лептина (16 кДа) состоит из 167 аминокислот с N-концевой секреторной сигнальной последовательностью из 21 аминокислот [96]. Относится к цитокинам - сигнальным белкам. Молекула лептина имеет четыре спиральные цепи с пятью - шестью полными оборотами. Основная физиологическая роль лептина проявляется снижением синтеза макроэргов и повышением затрат энергии [97]. Его механизм действия заключается в передаче в гипоталамус информации о массе тела и жировом обмене. Взаимодействие лептина со специфическими рецепторами, расположенными в гипоталамической области активирует выработку нервных импульсов, направленных в участки головного мозга, ответственные за регуляцию аппетита. Кроме того, действие лептина стимулирует симпатическую нервную систему, что в свою очередь ведёт к повышению артериального давления, частоты сердечных сокращений и процессов термогенеза, путём разобщения процессов окисления (клеточного дыхания) и фосфорилирования (синтез молекул АТФ) в митохондриях белой жировой ткани. В результате этих процессов большое количество энергии, которое запасается в жировой ткани в виде липидов, может быть преобразовано в тепло. Лептин часто называют гормоном насыщения. Считается, что он действует на гипоталамус, блокируя синтез и высвобождение нейропептида Y, вызывающего чувство голода.
Также при выращивании молодых коров было показано, что лептин играет важную роль в инициации половой зрелости.
Лептин может действовать как на уровне гипоталамуса, так и на уровне периферических тканей, например, гонадные ткани. Так было показано, что у крупного рогатого скота лептин непосредственно повлиял на стероидогенез яичников.
Ген лептина крупного рогатого скота расположен в четвертой хромосоме. Он состоит из трех экзонов и двух интронов. Только два экзона кодируют последовательность аминокислот лептина. Кодирующая область гена лептина (ее длина составляет 501 п.н.) входит в состав второго и третьего экзонов, которые разделены интроном с длиной примерно 2 т.п.н. Область промотора охватывает около 3 т.п.н. [98].
Интересующие однонуклеотидные полиморфизмы расположены в разных зонах гена лептина. Их местоположение приведено в таблице 2 [99].
Таблица 2 - Описание отдельных полиморфизмов гена bLEP
| Наименование SNP | Нуклеотидная | Область гена | Область белка |
|---|---|---|---|
| замена | лептина | ||
| 1 | 2 | 3 | 4 |
| C(-963)T | C/T | промотор | - |
