Таблица 15
Данные биохимического исследования сыворотки крови коров (M ± m; n=10)
| Показатели | Функциональное состояние щитовидной железы | ||
|---|---|---|---|
| Гипертиреоз | Эутиреоз | Гипотиреоз | |
| Общий белок, г/л | 67,0±1,13* | 70,0±1,10 | 68,0±1,15* |
| Альбумины, % | 45,2±0,68 | 40,7±0,56 | 34,3±1,0 |
| Альфа-глобулин, % | 10,8±0,22 | 15,6±0,21 | 21,2±0,37 |
| Бета-глобулин, % | 11,2±0,36 | 16,4±0,25 | 22,3±0,42 |
| Гамма-глобулин, % | 33,0±0,57 | 27,4±0,51 | 22,3±0,66 |
| Коэффициент А/Г | 0,8±0,02 | 0,7±0,02 | 0,5±0,03 |
Примечание. Достоверность разницы между гипер-, гипо- и эутиреозом во всех случаях <0,05; * – недостоверно.
Рефрактометрическое определение общего белка в сыворотке крови у коров показало, что количество общего белка при различных функциональных состояниях щитовидной железы мало изменяется, но его фракционный состав зависит от функционального состояния щитовидной железы. Из данных таблицы 15 видно, что уровень содержания альбуминов и гамма-глобулинов в сыворотке крови у животных при гиперфункции щитовидной железы увеличено на 11% (Р<0,05); 20% (Р<0,01) и снижено при гипофункции на 8% (Р<0,05); 9% (Р<0,05). Отмечали снижение содержания альфа- и бета-глобулинов при гипертиреозе и увеличение – при гипотиреозе на 30%; 44%. При гипофункции щитовидной железы наблюдали снижение коэффициента А/Г до 36% (Р=0).
2.3.5. Содержание азота в сыворотке крови коров
Содержание азота в сыворотке крови животных изменяется в зависимости от функционального состояния щитовидной железы. Уровни содержания азота в сыворотке крови коров приведены в таблице 16.
Таблица 16
Содержание азота в сыворотке крови коров (M ± m; n=10)
| Функции | Азот, ммоль/л | ||
|---|---|---|---|
| щитовидной железы | Общий | Остаточный | Белковый |
| Гипертиреоз | 21,2±0,57 | 1,21±0,10* | 20,0±0,55 |
| Эутиреоз | 19,6±0,36 | 1,07±0,6 | 18,6±0,44 |
| Гипотиреоз | 17,5±0,66 | 1,14±0,11* | 16,4±0,63 |
Примечание. Во всех случаях разница между опытом и контролем достоверна при Р<0,05; * – недостоверна.
Материалы таблицы 16 свидетельствуют о том, что содержание общего азота увеличено при гиперфункции на 5% и снижено при гипофункции на 8%, хотя эти изменения не имеют статистической достоверности. Содержание остаточного азота при гипер- и гипофункции мало изменяется. Отмечалось увеличение белкового азота при гиперфункции и снижение на 9% – при гипотиреозе.
2.3.6. Содержание свободных аминокислот
в сыворотке крови коров
Данные исследования содержания свободных аминокислот представлены в таблице 17.
Из ниже приведенной таблицы видно, что у коров при гипофункции щитовидной железы наблюдается уменьшение концентрации в сыворотке крови лизина, гистидина, аргинина, аспарагиновой и глутаминовой кислот, аланина, валина+метионина, фенилаланина+тирозина, лейцина, уровень глицина, серина и треонина имел тенденцию к повышению.
Таблица 17
Содержание свободных аминокислот в сыворотке крови коров (M ± m; n=10)
| Аминокислоты, ммоль/л | Состояние щитовидной железы | ||
|---|---|---|---|
| Гипертиреоз | Эутиреоз | Гипотиреоз | |
| Лизин | 4,7±0,3 | 2,8±0,1 | 1,9±0,2* |
| Гистидин | 6,7±0,6 | 4,8±0,1 | 3,0±0,2 |
| Аргинин | 2,9±0,29 | 1,5±0,12 | 0,86±0,12* |
| Аспарагиновая кислота | 7,1±0,15 | 4,7±0,2 | 2,8±0,14 |
| Глицин | 7,2±0,14 | 8,7±0,3 | 11,3±0,3 |
| Серин | 6,8±0,14 | 4,6±0,2 | 7,6±0,13 |
| Глутаминовая кислота | 7,5±0,16 | 5,8±0,3 | 3,9±0,1 |
| Треонин | 6,3±0,14* | 5,9±0,22 | 5,4±0,12* |
| Аланин | 16,4±0,26 | 14,3±0,23 | 12,3±0,15 |
| Валин+метионин | 14,9±0,36 | 17,4±0,4 | 12,1±0,15 |
| Фенилаланин+тирозин | 6,6±0,24 | 5,2±0,19 | 3,8±0,13 |
| Лейцин | 16,2±0,36 | 12,9±0,3 | 9,1±0,14 |
Примечание. Во всех случаях разница между опытом и контролем достоверна при Р<0,05; * – недостоверна.
При гиперфункции щитовидной железы содержание лизина, гистидина, аргинина, аспарагиновой и глутаминовой кислот, аланина, валина+метионина, фенилаланина+тирозина, лейцина в сы-
воротке крови повышено по сравнению с таковыми у животных при гипофункции щитовидной железы. Коэффициент корреляции между Д/н-фактором и свободными аминокислотами в сыворотке крови коров при гипотиреозе, равный для гистидина – 0,20, аргинина – 0,28, аланина – 0,35, позволяет характеризовать данную зависимость по степени связи слабой, по характеру – обратной.
Коэффициент корреляции между Д/н-фактором и глицином, равный 0,18, серином – 0,20, глутаминовой кислотой – 0,24, по степени был слабым, по характеру – прямым. Вычисленные коэффициенты корреляции подтверждают прямую зависимость между Д\нфактором и концентрацией аминокислот в сыворотке крови. Взаимосвязь между относительной массой и лизином, аспарагиновой кислотой и серином слабая обратная (-0,35; -0,10; -0,15), с глицином, фенилаланином+тирозином и лейцином (0,18; 0,21; 0,22) – прямая слабая. Корреляция между общим йодом имеет обратную слабую связь с глицином, серином, глутаминовой кислотой (-0,05; -0,17; -0,16), с треонином, валин+метионином, фенилаланин+тирозин – прямую слабую связь (0,28; 0,33; 0,26). Отмечается слабая связь БСИ (белковосвязанного йода) с гистидином, аргинином, треонином, валином+метионином (0,27; 0,17; 0,26; 0,24), прямая умеренная связь с аспарагиновой кислотой и фенилаланином+тирозином (0,45; 0,34), обратная слабая связь с глицином (-0,12).
При гипертиреозе зависимость между Д/н-фактором и валин+метионин по степени связи слабая, а по характеру обратная (-0,28), с гистидином, глутаминовой кислотой, аланином, фенилаланином+ тирозином и лейцином – прямая слабая связь (0,22; 0,24; 0,19; 0,19), с аспарагиновой кислотой и треонином – прямая умеренная (0,43; 0,30). Коэффициент корреляции между относительной массой щитовидной железы, треонином и лейцином указывает на прямую слабую связь (0,27; 0,17; 0,28; 0,29; 0,22), с гистидином, аргинином, валином+метионином – прямую умеренную (0,33; 0,39;, 0, 38).
Отмечается прямая слабая взаимосвязь между общим йодом и лизином, гистидином, глицином, аланином (0,20; 0,21; 0,28; 0,17), прямая умеренная (0,31; 0,36; 0,41; 0,32) с аспарагиновой кислотой, серином, фенилаланином+тирозином и лейцином.
Корреляция белковосвязанного йода с лизином, аспарагиновой кислотой, глицином, глутаминовой кислотой, валином+метионином, фенилаланином+тирозином – прямая слабая (0,13; 0,28; 0,27; 0,25; 0,27; 0,24), с серином, треонином и лейцином – прямая
умеренная связь (0,40; 0,42; 0,30).
При нормальной функции щитовидной железы зависимость между Д\н-фактором и глицином, аргинином, аспарагиновой кислотой, аланином – обратная, но по степени связи небольшая (-0,13; - 0,17; -0,16; -0,15), с гистидином отмечается прямая слабая связь (0,17).
С относительной массой щитовидной железы аргинин, треонин, валин+метионин имеют обратную слабую корреляцию (-0,28; -0,16; -0,16), глицином, глутаминовой кислотой, фенилаланином+тирозином – прямую слабую связь (0,13; 0,16; 0,10), серином – прямую умеренную (0,36).
Взаимосвязь общего йода с лизином, аргинином, фенилаланином+тирозином прямая слабая (0,13; 0,13; 0,29), с аспарагиновой кислотой, треонином и валином+метионином – обратная слабая (-0,14; -0,29; -0,29). Коэффициент корреляции белковосвязанный йод с аспарагиновой кислотой, валином+метионином показывает обратную слабую связь (-0,24; -0,11), с фенилаланином+тирозином – прямую слабую связь (0,20).
Таким образом, полученные результаты исследований указывают на связь между содержанием свободных аминокислот в сыворотке крови и Д/н-фактором, относительной массой щитовидной железы, уровнем общего и белковосвязанного йода в сыворотке крови, величина и направление которой зависит от функционального состояния щитовидной железы.
Глава 4. Результаты исследований
при экспериментальном гипо- и гипертиреозе у коров
2.4.1. Аминокислотный обмен при экспериментальном
гипо- и гипертиреозе у коров
Изменение влияния щитовидной железы на организм требует исследования ее функционального состояния. Определение функции щитовидной железы в местностях с различным обеспечением организма йодом, в том числе непосредственно в зобноэндемических очагах, представляет большой интерес. Щитовидной железе принадлежит важнейшая роль в регулировании азотистого обмена, в том числе синтеза белков, в вовлечении в метаболизм аминокислот. Данные литературы указывают на то, что в медицине гормоны щитовидной железы применяются в настоящее время не только при
заместительной терапии гипотиреоза. Выяснилось, что гормоны щитовидной железы могут оказывать лечебное действие при гипофункции щитовидной железы (ожирение, кожные заболевания, бесплодие, ломкость костей и др.). Исследование эндокринной системы и физиолого-биохимических свойств природных и синтетических гормонов имеет важное значение для повышения продуктивности животных и эффективности использования ими кормов.
Н.А. Шманенков (1967) подчеркивает, что самым мощным резервом стимуляторов широкого профиля действия являются гормоны, изучением которых в последние 15–20 лет занимались очень мало. Профилактические мероприятия в животноводстве, направленные на повышение содержания йода в рационах кормления животных, все еще проводятся крайне недостаточно (Смирнова Е.И., 1967 и др.; Simonne A., 1971; Pauwels B., 1961). Следует отметить, что одной из причин отсутствия йодной подкормки животных является то, что еще недостаточно изучен вопрос о потребности сельскохозяйственных животных в йоде в разных местностях.
Для изучения изменения показателей белково-аминокислотного обмена при экспериментальном гипо- и гипертиреозе крупного рогатого скота на молочно-товарном комплексе совхоза «Рассвет» Цивильского района Чувашской АССР нами был проведен научно-производственный опыт. Для исследования использовали клинически здоровых коров красно-горбатовской породы, шестилетнего возраста, со средней живой массой 535 кг, продуктивностью 2200 кг, с жирностью молока 3,85%. Подобранные животные были разделены по принципу аналогов на 3 группы по 5 коров в каждой (см. акт № 2 в приложении). Рацион кормления коров в хозяйстве в ноябре-декабре и в дальнейшем продолжении опыта имел следующий состав: солома яровая – 5 кг, силос смешанный (кукуруза, подсолнух) – 10 кг, картофель – 7 кг, концентраты – 3 кг, поваренная соль – 50 г, мочевина – 80 г, что соответствовало 11,0 кормовых единиц, 961 г переваримого протеина, 67,2 г кальция, 38,9 г фосфора и 400 мг каротина.
Перед постановкой опыта проведено клиническое исследование всех животных по общепринятой методике. При этом установлено, что общее состояние у всех животных было удовлетворительным, животные были средней упитанности, отклонений от нормы со стороны шерстного покрова, кожи, лимфатических узлов, слизистых оболочек и внутренних органов не отмечалось.
В первой группе данные температуры тела, частоты пульса, дыхания и сокращения рубца находились в следующих пределах: температура тела – 38,3±0,29, пульс – 60,6±6,66, дыхание – 27,6±1,79 и сокращение рубца – 14,0±0,70 за пять минут; во второй группе: температура тела – 38,8±0,16, пульс – 77,6±7,23, дыхание – 26,4±3,36 и сокращение рубца – 13,0±1,05; в третьей группе: температура тела – 38,8±0,18, пульс – 74,0±2,45, дыхание – 33,6±2,19 и сокращение рубца – 13,5±1,20.
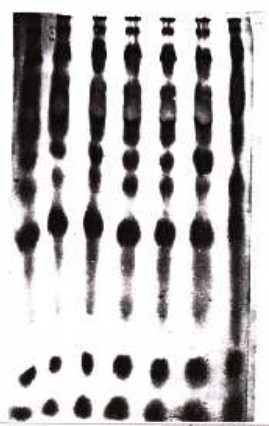
При статистической обработке данных температуры тела, частоты пульса, дыхания и сокращения рубца между тремя группами не было установлено статистически достоверного различия. Мы проводили хроматографию на бумаге сыворотки крови крупного рогатого скота при экспериментальных гипо- и гиперфункциях щитовидной железы. Полученные данные (рис. 20, 21) свидетельствуют о существенном различии между хроматограммами при гипо- и гиперфункции щитовидной железы. В частности, участки хроматограмм отдельных аминокислот при гиперфункции окрашены более интенсивно, чем аналогичные участки хроматограмм при гипофункции, что связано с более высоким содержанием свободных аминокислот в сыворотке крови при гиперфункции щитовидной железы.