
в позиции 45, имея замену аминокислоты глутаминовой кислоты на глутамин. Отличие варианта В выявляется в шестьдесят четвертой позиции, где в результате замены второго основания триплета GAT на GGT происходит замена аспаргиновой кислоты на глицин. Вариант С характеризуется заменой последнего основания в триплете CAG на CAC, что влечет за собой образование гистидина вместо глутамина в пятьдесят девятой позиции βLG. Исследование полиморфизма локуса βLG показало, что отличие аллеля А от В определяется в шестьдесят четвертой аминокислотной позиции (аспаргиновой кислоты в A, глицин в B) и в сто восемнадцатой позиции (валина в A, аланина в B).
Установлена взаимосвязь варианта В bβLG с высокими показателями молочной продуктивности и белковомолочности, что согласуется с результатами электрофоретического анализа белков молока, проведенного и описанного Braunschweig с соавторами. Полученные данные обсуждаются с точки зрения применения предложенного метода для оптимизации селекционных методов повышения частоты аллеля bβLGВ в линиях КРС. Также Braunschweig и Leeb сообщают, что у животных-носителей аллельного варианта В гена βLG отмечен низкий синтез матричной РНК и, как следствие, отсутствие экспрессии данного белка.
Благоприятный для молочной промышленности аллель В беталактоглобулина обнаруживается у большинства европейских пород крупного рогатого скота - айрширской, шортгорнской, красной датской, голштинской, в частности в большинстве скандинавских пород крупного I рогатого скота. Исследователями также обнаружены существенные различия между стадами внутри одной породы по встречаемости генотипов белков и по генным частотам аллелей. Так, по черно-пестрой породе встречаемость аллеля В колеблется от 0,345 до 0,668, аллеля А от 0,332 до 0,655 [66].
В этой связи, диагностика полиморфизма гена bβLG , в частности обнаружение ценного аллеля В гена бета-лактоглобулина у КРС и выявление племенных животных-носителей данного аллеля является основным направлением в технологии получения высококачественного низкоаллергенного молока [67].
Контрольные вопросы:
-
В каком году впервые был выделен бета-лактоглобулин?
-
Биологическая роль белка βLG.
-
Сколько описано аллельных вариантов гена βLG?
-
Какая аллель гена бета-лактоглобулина связана с высокими
показателями белковомолочности?
- Структура белка бета-лактоглобулина.
1.2.4 Полиморфизм гена пролактина ( bPRL )
Пролактин (PRL, лактогенный гормон, маммотропин, лютеотропный гормон) является одним из самых универсальных гормонов гипофиза с точки зрения его биологической функциональности. В настоящее время установлено более 100 разнообразных физиологических функций этого гормона [68]. Пролактин необходим для инициации и поддержания лактации, будучи также, в первую очередь, ответственным за синтез молочных белков, жиров, лактозы и других основных компонентов молока [69].
Пролактин является полипептидным гормоном, секретируемым главным образом передней долей гипофиза [68]. У КРС этот гормон состоит из 199 аминокислот [70]. Эксперименты по удалению гена пролактина доказали его роль в развитии молочной железы, образовании молока и экспрессии генов молочных белков [71]. Поэтому у КРС ген пролактина ( bPRL ) может являться идеальным кандидатом для анализа связи локусов количественных признаков (QTL) c показателями молочной продуктивности.
Ген bPRL локализован в области q21 хромосомы 23 и состоит из пяти экзонов и четырёх интронов (рисунок 3), протяжённостью 10 т.п.н [72]. Также установлено, что он тесно сцеплен с генами класса I и класса II главного комплекса гистосовместимости. Наиболее тесное сцепление отмечено между генами bPRL и BoLA-DRB 3 [73]. На основании анализа последовательности кДНК гена bPRL четырёх различных клонов было установлено семь возможных нуклеотидных замен. Одной из них является описанная H.A. Lewin с соавт. (1992) "молчащая" A→G замена в экзоне III гена, возникающая в кодоне для 103 аминокислоты и приводящая к появлению полиморфного Rsa I-сайта [74]. Этими же авторами впервые показано влияние данной замены у КРС на такие показатели молочной продуктивности как величина удоя, процентное содержание белка и жира в молоке. Позднее было подтверждено влияние Rsa I- полиморфизма bPRL на показатели молочной продуктивности КРС [75]. В целом работ на эту тематику было проведено достаточно много, но все они противоречивы и требуют более детального изучения.
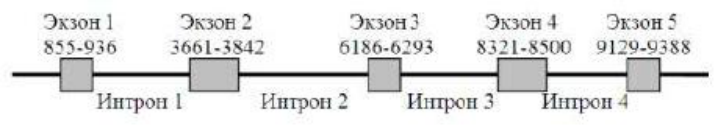
Распределение частот генотипов и аллелей по Rsa I-полиморфизму гена bPRL у КРС изучалось многими исследователями. В частности, в исследованиях M. Sodhi et al., проведённых на 23 аборигенных породах Индии ( Bos indicus ), было выявлено преобладание гетерозиготного генотипа AB
24
(средняя частота 0,58) независимо от направления продуктивности и географического региона. Средняя частота гомозиготных генотипов составила 0,22 для генотипа AA и 0,20 для генотипа AB . Частоты аллельных вариантов A и B находились приблизительно на одинаковом уровне и равнялись 0,52 и 0,48, соответственно [77]. В работе A. Dybus et al. (2005), проведённой на животных чёрно-пёстрой и джерсейской пород, было установлено, что в чёрно-пёстрой породе преобладал аллель A (85,33%), в то время в джерсейской породе преобладал аллель B (69,19%). Такое различие частот аллельных вариантов определило и различия в распределениях генотипов у этих пород. Так в чёрнопёстрой породе частота генотипа AA составила 71,07%, генотипа BB – 0,42%, в джерсейской – 9,19% и 47,57%, соответственно [78]. У таких аборигенных российских пород ( Bos taurus ) как якутская, ярославская, бестужевская и костромская I.V. Lazebnaya et al. (2013) установили частоты генотипов bPRL - RsaI . Так частота генотипа AA для этих пород составила 0,561, 0,425, 0,474, 0,556, генотипа AB – 0,341, 0,442, 0,421, 0,387, генотипа BB – 0,098, 0,133, 0,105, 0,056, соответственно. При этом частота аллеля A (0,646-0,750) во всех четырёх породах превосходила частоту аллеля B (0,250-0,354) в среднем в 2-2,5 раза. В голштинской породе КРС частота аллеля A , по данным М.Е. Михайловой и Е.В. Белой (2011) находилась на уровне 89,0%, по данным P. Chrenek et al. (1998) – 95,0% [79].
Участвуя в инициации и поддержании лактации у млекопитающих, пролактин может служить потенциальным генетическим маркером молочной продуктивности КРС, а как следствие и дополнительным критерием отбора при селекции.
Гены соматотропинового каскада, такие, как ген гипофизарного фактора роста-1 ( bPit-1 ), ген гормона роста ( bGH ), ген рецептора гормона роста ( bGHR ) и ген инсулиноподобного фактора роста-1 (bIGF-1) также участвуют в регуляции процесса лактации. Ниже эта информация будет рассмотрена более подробно.
Контрольные вопросы:
-
Биологическая роль белка пролактина.
-
Где локализован ген пролактина?
-
Какой генотип гена bPRL с низкой жирностью молока у животных?
-
Ассоциацию какого полиморфизма гена пролактина исследуют с
признаками молочной продуктивности крупного рогатого скота?
- Какие еще гены участвуют в регуляции процесса лактации?
1.3 Генетическое маркирование признаков мясной продуктивности
В настоящее время в литературе имеются сообщения о нескольких маркерных генах, связанных с липидным метаболизмом и влияющих на мясные
