
Окончание таблицы
| Месяцы | Первая группа | |||
|---|---|---|---|---|
| Аминокислоты сыворотки крови, мкмоль/л | ||||
| аланин | метионин | тирозин | валин | |
| Ноябрь | 15,3±0,36 | 5,3±0,15 | 2,4±0,14* | 12,2±0,24* |
| Декабрь | 16,6±0,37 | 6,3±0,22 | 2,9±0,13 | 13,1±0,23 |
| Январь | 14,9±0,52 | 6,1±0,19 | 3,3±0,14 | 12, ±0,18 |
| Февраль | 16,0±0,52 | 5,4±0,18 | 3,3±0,15 | 12,0±0,19 |
| Март | 13,2±0,33 | 6,6±0,20 | 2,5±0,14 | 11,8±0,14 |
| Апрель | 15,5±0,39 | 7,0±0,17 | 3,4±0,17 | 12, ±0,18 |
| Май | 14,1±0,31 | 6,9±0,19 | 3,5±0,14 | 12,8±0,17 |
| Июнь | 16,6±0,36 | 7,0±0,18 | 2,4±0,13 | 13,5±0,15 |
| Июль | 15,1±0,38 | 6,6±0,15 | 2,0±0,12 | 12,7±0,16 |
| Август | 26,2±0,67 | 6,4±0,17 | 2,3±0,13 | 13,4±0,15 |
| Сентябрь | 15,7±0,68 | 6,4±0,15 | 2,0±0,13 | 13,1±0,23 |
| Октябрь | 14,6±0,55 | 7,3±0,24 | 2,8±0,14 | 12,0±0,14 |
| Месяцы | Вторая группа | |||
| Аминокислоты сыворотки крови, мкмоль/л | ||||
| аланин | метионин | тирозин | валин | |
|---|---|---|---|---|
| Ноябрь | 12,6±0,55 | 4,4±0,15 | 2,6±0,22* | 12,2±0,26* |
| Декабрь | 13,5±0,56 | 5,0±0,20 | 2,6±0,22 | 11,6±0,25 |
| Январь | 15,7±0,42 | 6,1±0,18 | 3,0±0,22 | 12,3±0,20 |
| Февраль | 14,9±0,46 | 5,1±0,18 | 1,8±0,13 | 11,3±0,16 |
| Март | 13,2±0,51 | 5,6±0,16 | 2,2±0,13 | 11,2±0,23 |
| Апрель | 14,0±0,55 | 6,7±0,27 | 2,6±0,13 | 11,3±0,14 |
| Май | 15,4±0,58 | 6,2±0,18 | 2,0±0,13 | 12,2±0,26 |
| Июнь | 15,1±0,57 | 6,5±0,17 | 2,3±0,13 | 13,1±0,25 |
| Июль | 14,8±0,55 | 6,4±0,14 | 1,8±0,12 | 12,9±0,25 |
| Август | 15,2±0,57* | 6,7±0,18* | 2,4±0,14* | 12,7±0,23 |
| Сентябрь | 15,5±0,56 | 6,0±0,15 | 2,3±0,14 | 12,8±0,23 |
| Октябрь | 14,3±0,58* | 6,7±0,15 | 2,9±0,20 | 11,7±0,23 |
| Месяцы | Третья группа | |||
| Аминокислоты сыворотки крови, мкмоль/л | ||||
| аланин | метионин | тирозин | валин | |
|---|---|---|---|---|
| Ноябрь | 13,3±0,47 | 4,5±0,14 | 2,4±0,13 | 12,1±0,26 |
| Декабрь | 11,8±0,45 | 3,3±0,13 | 1,9±0,13 | 11,6±0,27 |
| Январь | 13,1±0,46 | 4,6±0,15 | 2,4±0,15 | 11,4±0,27 |
| Февраль | 12,5±0,46 | 4,0±0,19 | 1,8±0,12 | 11,5±0,28 |
| Март | 10,9±0,49 | 5,2±0,19 | 3,2±0,14 | 10,6±0,30 |
| Апрель | 13,9±0,43 | 6,0±0,16 | 2,4±0,13 | 11,0±0,25 |
| Май | 14,3±0,47 | 6,2±0,21 | 1,9±0,13 | 11,9±0,21 |
| Июнь | 15,8±0,50 | 5,9±0,15 | 2,2±0,12 | 12,2±0,26 |
| Июль | 15,2±0,48 | 6,1±0,14 | 2,1±0,15 | 13,4±0,25 |
| Август | 15,4±0,46 | 7,0±0,19 | 2,5±0,13 | 13,2±0,27 |
| Сентябрь | 15,3±0,46 | 5,8±0,17 | 2,3±0,14 | 12,3±0,26 |
| Октябрь | 14,3±0,46 | 6,5±0,15 | 3,1±0,14 | 11,6±0,27 |
повышалось до мая. В дальнейшем показатели содержания аспарагиновой и глутаминовой кислот снижались по сравнению с таковыми у животных контрольной группы.
Содержание аргинина и лизина в сыворотке крови у животных первой группы повышалось до июля. Достоверное различие в содержании аргинина между опытом и контролем отмечено в декабре, январе, феврале и мае (Р<0,05), а в содержании лизина – в декабре, январе и мае (Р<0,05). В дальнейшем концентрация аминокислот в сыворотке крови у животных в июле, августе снижалась и становилась ниже, чем таковая у животных контрольных групп, а к концу опыта содержание аминокислот хотя и находилось на уровне исходных величин, но было значительно выше, чем концентрация аминокислот в сыворотке крови у животных контрольных групп.
У животных после применения подкормок калия йодидом и тетравитом концентрация аргинина и лизина в сыворотке крови в течение всего периода исследования была выше, чем таковая у контрольных животных, но выявленные изменения не были достоверны.
Максимальное содержание аргинина и лизина в сыворотке крови коров отмечалось в августе, а минимальное – в декабре.
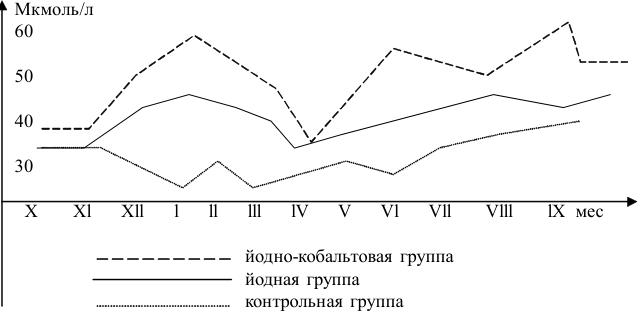
У животных «йодно-кобальтовых» групп после применения подкормки тетравитом содержание в сыворотке крови метионина за весь период исследования оказалось выше, чем таковое у животных контрольных групп. Достоверное увеличение отмечалось в декабре, январе и феврале (Р<0,05). Необходимо отметить, что в зимне-весенний период у подопытных животных содержание метионина в сыворотке крови колебалось более резко, а в летне-осенний период оно было более или менее постоянным (рис. 30).
Концентрация метионина в сыворотке крови у животных йодной группы была достоверно выше в декабре и январе (Р<0,05), в феврале отмечалось достоверное ее снижение (Р<0,05), в дальнейшем происходило равномерное недостоверное ее повышение до конца опыта.
Примечание. Во всех случаях разница между опытом и контролем достоверна; * – недостоверна.
Мкмоль/л
60
50
40
30
X Xl Xll l ll lll lV V Vl Vll Vlll lX мес
йодно-кобальтовая группа
йодная группа
контрольная группа
Рис. 30. Содержание суммы незаменимых аминокислот в сыворотке крови животных при подкормке калия йодидом, кобальта хлоридом и тетравитом
Результаты исследований показали, что у животных первой группы содержание тирозина в сыворотке крови имело скачкообразное колебание и снижалось в марте. Достоверное повышение отмечали в декабре, январе, феврале и апреле (Р<0,05). Содержание тирозина в сыворотке крови животных в марте становилось ниже, чем в контроле, в апреле, мае оно равномерно повышалось, с августа и до конца опыта снижалось.
Концентрация тирозина в сыворотке крови животных второй группы в декабре и январе имеет тенденцию к повышению. С февраля и до конца опыта уровень содержания тирозина в сыворотке крови животных равномерно снижался, хотя эти показатели были выше, чем таковые у животных контрольной группы. У животных первой группы отмечено достоверное повышение фенилаланина в сыворотке крови в декабре, январе и апреле (Р<0,05). С февраля и до конца опыта уровни содержания этой аминокислоты были выше, чем таковые у животных контрольных групп. У коров во второй группе после применения подкормок тетравитом содержание фенилаланина в сыворотке крови животных имело тенденцию к повышению. С февраля и до июля концентрация фенилаланина находилась по сравнению с контролем на одинаковом уровне. В августе, в сентябре уровень фенилаланина в сыворотке крови животных имел тенденцию к повышению.
Уровень содержание лейцина в сыворотке крови у животных первой группы через месяц после применения подкормок микроэлементами и витаминами имел тенденцию к повышению до июля. В июле и до конца опыта уровни содержания лейцина были ниже, чем таковые у животных контрольных групп.
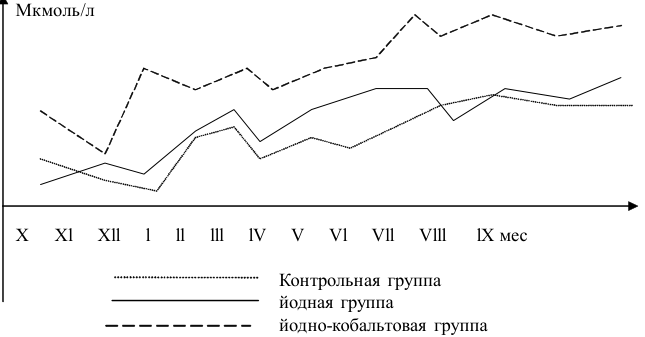
Содержание аланина в сыворотке крови животных в декабре, январе и феврале было достоверно выше, чем таковое у животных контрольных групп (Р<9,05). У животных второй группы содержание аланина в сыворотке крови от начала подкормок равномерно повышалось до июня. Отмечались достоверные изменения этого показателя в декабре и феврале (Р<0,05). С июня и до конца опыта уровни содержания аланина были ниже, чем в контроле (рис. 31).
Мкмоль/л
X Xl Xll l ll lll lV V Vl Vll Vlll lX мес
Контрольная группа
йодная группа
йодно-кобальтовая группа
Рис. 31. Содержание суммы заменимых аминокислот в сыворотке крови животных при подкормке калия йодидом и кобальта хлоридом
В сыворотке крови животных первой группы отмечалось достоверное повышение уровня содержания валина в декабре, январе (Р<0,05). С августа и до конца опыта отмечалось повышение содержания валина по сравнению с таковым у животных контрольных групп. У коров во второй группе содержание валина в сыворотке крови животных после применения подкормок калия йодидом и кобальта хлоридом и до конца опыта было выше, чем таковое у контрольных животных. В содержании глицина в сыворотке крови у животных первой группы достоверное увеличение отмечалось
в декабре и январе (Р<0,05), с февраля и до конца исследования результаты были выше, чем в контроле, хотя они не имели достоверного значения. У коров во второй группе содержание глицина в сыворотке крови имеет тенденцию к повышению до августа, с этого месяца и до конца опыта величина указанного показателя была ниже, чем таковая в контроле.
Проведенные исследования показали, что в зоне йодной недостаточности уровень свободных аминокислот в сыворотке крови животных под действием калия йодида и тетравита возрастает по сравнению с таковым у животных контрольной группы. Дополнительная подкормка кобальта хлоридом и тетравитом активизирует деятельность щитовидной железы и вызывает более значительное увеличение содержания свободных аминокислот в сыворотке крови животных. Поэтому для улучшения деятельности щитовидной железы необходимо вводить в рацион одновременно добавки йода, кобальта и тетравита.
Так, Н.И. Передереев (1959) отмечает, что при введении в рацион высокопродуктивных коров смеси микроэлементов в сыворотке крови увеличивается содержание лейцина, валина, аланина, глутаминовой кислоты и треонина.
К.С. Сейткалиев (1967) установил, что подкормка овец микроэлементами и обогащение рациона белком способствовали увеличению количества свободных аминокислот в сыворотке крови. У животных в опытных группах уровни содержания цистина, лизина, гистидина, аргинина, валина+метионина, лейцина+изолейцина были выше по сравнению с контролем.
Р.Г. Бинеев, Р.М. Абдуллина (1973) установили влияние одноразовой подкожной инъекции комплексных соединений меди (обогащенной йодом с метионином и кобальтом с метионином) в зоне с недостаточным содержанием меди, кобальта и йода, что количество общих аминокислот в молоке коров повышается. Содержание лизина увеличивается на 18, глутаминовой кислоты – на 11, пролина – на 8, глицина – на 13, аланина – на 14, метионина – на 26, изолейцина – на 12 и тирозина – на 9%.
Коэффициент корреляции между общим йодом и лизином в сыворотке крови животных при подкормке калия йодидом и кобальта хлоридом, равный в январе 0,36, мае – 0,36, июле – 0,45, позволяет характеризовать данную зависимость по степени связи
как умеренную, по характеру как прямую, в декабре связь умеренная (-0,40) и июне – заметная обратная (-0,59). Взаимосвязь между общим йодом и лизином в декабре – прямая умеренная (0,33); июле и августе – заметная (0,57 и 0,60); в октябре – обратная заметная (-0,56) и в апреле – умеренная (-0,37) в группе животных, получавших подкормку калия йодидом. В контрольной группе взаимосвязь между йодом и лизином обратная умеренная в октябре, декабре, сентябре (-0,38; -0,31; -0,42) и прямая заметная в феврале, июле (+0,45; +0,34).
Проведенные исследования показали, что у животных йоднокобальтовой группы взаимосвязь между белковосвязанным йодом и лизином в июле прямая умеренная (0,34), в январе обратная умеренная – 0,46 и в ноябре, июне – заметная (-0,62; -0,57). Коэффициент корреляции у животных йодной группы между белковосвязанным йодом и лизином указывает на прямую умеренную связь в ноябре, июле, августе (0,46; 0,38; 0,49) и обратную слабую в октябре, апреле, мае (соответственно -0,27; -0,13; -0,25).
У животных контрольных групп взаимосвязь между белковосвязанным йодом и лизином обратная слабая в октябре, ноябре, декабре, марте (соответственно -0,29; -0,21; -0,36; -0,12). Отмечалась прямая заметная связь у животных в первой группе между общим йодом и гистидином в октябре, феврале, мае (соответственно 0,50; 0,40; 0,66) и обратная умеренная в апреле, августе (соответственно -0,36; -0,39).
Во второй группе коэффициент корреляции между общим йодом и гистидином, равный 0,50; 0,66; 0,62 соответственно в октябре, июне, июле, позволяет характеризовать данную зависимость по степени связи заметной, по характеру прямой.
В контрольной группе взаимосвязь между общим йодом и гистидином в марте, июне, августе, сентябре прямая, слабая (соответственно 0,11; 0,12; 0,15; 0,28).
Взаимосвязь между гистидином и белковосвязанным йодом у животных, получавших калий йодистый, кобальт хлористый и тетравит, прямая заметная в феврале, мае (соответственно 0,49; 0,64) и обратная умеренная в январе, марте, апреле, июле (соответственно –0,42; -0,40; -0,31; -0,40). В контрольной группе животных связь обратная слабая в феврале, мае (соответственно -0,20; -0,11).
Коэффициент корреляции БСЙ с аргинином в первой группе
