
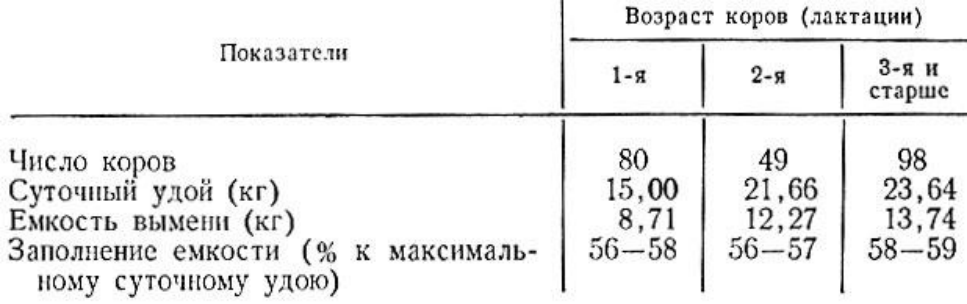
Таблица 1. Емкость вымени у коров красной чешской породы (по Б. Суханеку)
У коров красной пестрой чешской породы Б. Суханек установил емкость вымени через 18 часов после дойки на 30-50-й день лактации (табл. 1). Им было замечено, что в ходе лактации емкость вымени уменьшалась медленнее, чем удои коров. Б. Суханек нашел взаимосвязь между установленной емкостью вымени, его промерами и продуктивностью коров. Он рассчитал коэффициенты корреляции между емкостью вымени коров и максимальным суточным удоем-0,721; обхватом вымени-0,699; удоем за лактацию-0,646; длиной вымени-0,807; шириной вымени-0,588; глубиной вымени-0,834.
X. Миелке и В. Бернгард нашли, что альвеолярная емкость относительно постоянна, а цистернальиая часть представляет сильно варьирующий резервуар для накопления молока, после того как заполнится альвеолярная зона. Поэтому соотношение их динамично:
а) при больших интервалах и сильном наполнении вымени в цистернах 5060% удоя;
б) при среднем интервале и накоплении в цистернах только 20-40%;
в) при малом промежутке после доения цистерны слабо заполнены.
У отдельных коров смена обстановки и возбуждение могут сильно изменять эти соотношения. В разных долях вымени соотношение и объем цистернальной доли могут не совпадать, особенно если доли сильно различаются по продуктивности.
У. Андреа считает емкость вымени объективной характеристикой его железистой структуры. По его данным, вместимость вымени в среднем составила 62,6% объема максимального суточного удоя.
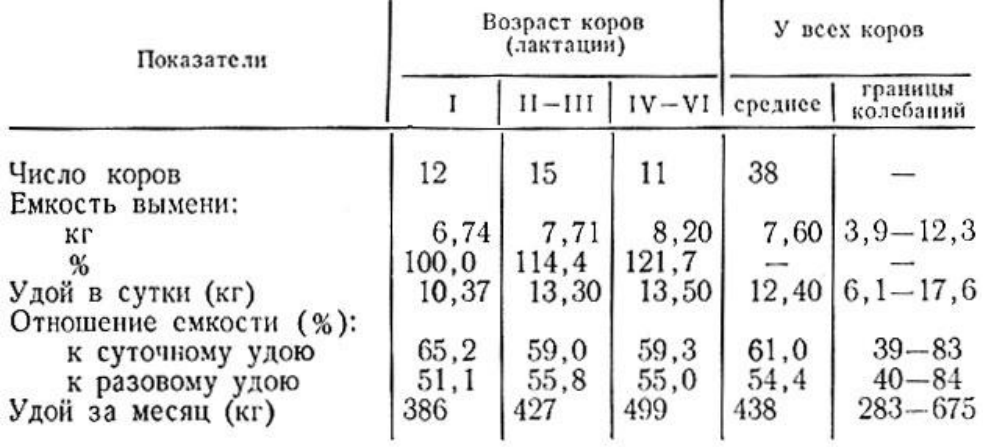
Tаблица 2. Соотношение емкости вымени и удоев у коров разного возраста
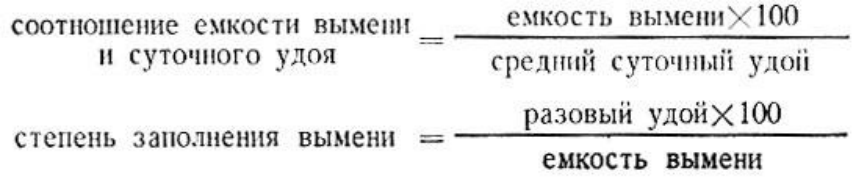
В наших опытах в учхозе "Елгава" (Латвийская ССР) было вычислено соотношение емкости вымени суточного удоя у 38 коров бурой латвийской породы (табл. 2). Все коровы находились на 2-5-м месяце лактации, дойка проводилась 3 раза в сутки. Для определения емкости вымени коров выдаивали через 16-17-часовой интервал, пропуская обеденную дойку. В течение трех дней подряд ежедневно учитывали удои и определяли среднесуточный, а также степень заполнения емкости вымени (%):
Вычисленная корреляция (0,83) с суточным удоем свидетельствует о том, что емкость вымени определяет величину удоя. При увеличении емкости на 1 кг суточный удой возрастает на 1,1 кг. Между емкостью вымени и месячным удоем коэффициент корреляции составляет +0,67. Эти данные подтвердили тесную взаимосвязь удоя и емкости вымени. Удои коров отражают емкость железы и количество железистой ткани в вымени.
Некоторые ученые предлагают учитывать емкость вымени как селекционный признак коров. Однако приведенные выше данные о тесной связи ее с удоями коров показывают, что отбор по продуктивности будет улучшать и емкость вымени.
Молоковыведение и внутривыменное давление
Молоковыведение, или молокоотдача в физиологическом понимании - согласованные рефлекторные реакции миоэпителия и гладкой мускулатуры
вымени, стенок и сфинктера соска в ответ на соответствующие раздражения кожи сосков и вымени в определенной обстановке (при доении или сосании теленком). Молокоотдачу характеризуют скрытый период рефлекса, изменение внутривыменного давления и скорости молоковыведения, а также различная степень торможения, или "задержки", молока. Молокоотдача протекает синхронно во всех четвертях вымени. Нервная система оказывает значительное влияние на эти процессы.
Рефлекс молокоотдачи протекает в две фазы. Первая фаза имеет небольшой латентный период (1-4 сек.) и характеризуется расслаблением гладкой мускулатуры цистерны и протоков, кратковременным понижением внутрицистернального давления (происходит подготовка к пропусканию и принятию молока из альвеол). Рефлекторная дуга в первой фазе начинается с рецепторов соска (рис. 7) и по афферентным волокнам задних корешков (1) проходит к спинному мозгу, далее через дорсальные и боковые канатики (2) спинного мозга к медиальным петлям (3) продолговатого мозга. По стволу мозга импульсы достигают супраоптических ядер (4) гипоталамуса, затем коры больших полушарий (5). От супраоптических ядер начинаются эффективные волокна, которые в составе супраоптико-гипофизарного 6) достигают нейрогипофиза (7). Нейрогипофиз в ответ на сосание или доение выделяет в кровь гормон окситоцин, который вызывает сокращение миоэпителия альвеол (8). Имеются данные, что миоэпителий (9) может сокращаться в ответ на механические раздражения железы. На уровне поясничных сегментов спинного мозга происходит переключение импульсов с афферентного на эфферентный путь, представленный симпатическими нервами молочной железы.
Вторая фаза - нейрогормональная - более длительна и связана с действием окситоцина на миоэпителий альвеол. Латентный период второй фазы около 35-40 сек.
Под влиянием окситоцина (или комплекса гормонов - питуитрина) резко сокращается миоэпителий альвеол, изгоняя молоко в протоки. При этом протоки сокращаются, отчего увеличивается их просвет, облегчая переход молока в цистерну.
Сокращение мускулатуры крупных протоков, цистерны и сфинктера соска регулируется эффективными эфферентными нервами молочной железы, а не окситоцином. Эфферентные пути наружного семенного нерва состоят из нервных волокон, вызывающих спазмы и сокращение гладкомышечных волокон, и из волокон, вы-зывающих расслабление гладкой мускулатуры.
Благодаря быстрой выработке условных рефлексов на обстановку (стереотип) доения молоко из альвеол и мелких протоков к моменту доения переходит в цистерну, из которой быстро выдаивается.
