
В опытах А. А. Сюсюкина выяснилось, что чем выше разовый удой в различные дойки, тем жороче скрытый период рефлекса молоковыведения. В начале и в разгаре лактации коров рефлекс молоковыведения протекал бурно и латентньш период в среднем был короче (48- 49 сек.), чем к концу лактации (86-96 сек.). Поэтому во второй половине лактации необходимо более интенсивное и продолжительное стимулирование, чтобы добиться энергичной молокоотдачи и полного опорожнения вымени при одновременном сокращении времени доения коров.
Соотношение пропорций удоя определяют с помощью катетеризации сосков. Сначала без стимуляции молоковыведения пассивно вытекает через катетер цистернальная порция. Затем производят массаж и доение остальных сосков. В результате сокращения альвеол и мелких протоков через катетер получают альвеолярную, или рефлекторную, часть удоя. После инъекции окситоцина доением извлекается остаточное, или резидуальное, молоко.
Многочисленными исследованиями установлено, что альвеолярная порция относительно устойчива, тогда как цистернальная часть удоя значительно варьирует. Их соотношение изменяется в зависимости от индивидуальных различий животных и стадий лактации, возраста коров, интервала и стереотипа доек, емкости вымени, цистернального давления и др. Это затрудняет (наряду с технической сложностью) определение и интерпретацию получаемых данных в условиях ферм. Обычно такие опыты проводятся при ручном выдаивании небольшого числа коров, что ограничивает использование полученных данных в селекционной работе.
Изучая взаимосвязи порций удоя при двух и трехкратной дойке коров, В. В. Кулик установил, что объем альвеолярной порции относительно устойчив в течение ряда месяцев лактации, а доля цистернальной порции в удое колебалась и зависела от интервалов дойки (табл. 3).
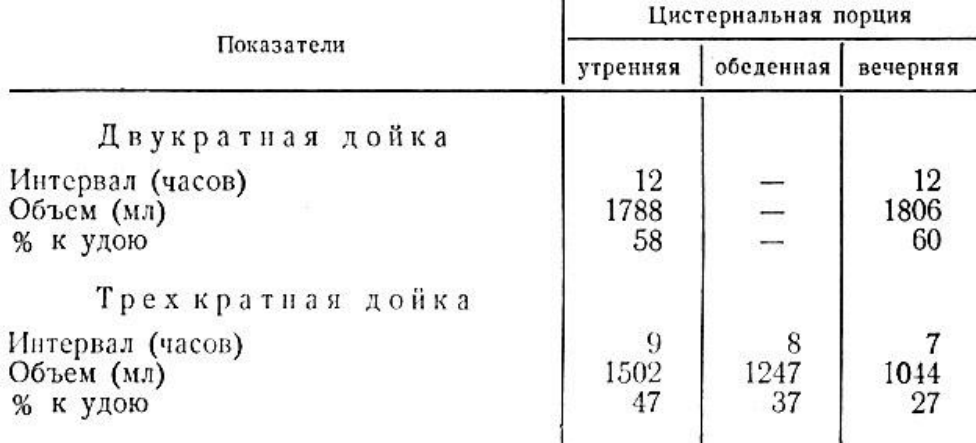
Таблица 3. Объем цистернальной порции в зависимости от интервалов
П. В. Полетаев, исследуя особенности рефлекса молоковыведения у высокоудойных, но с разной жирностью молока коров холмогорской и ярославской пород на 2-5-м месяце лактации, нашел, что в утреннюю дойку у жирномолочных коров объем цистернальной порции в 3,25 раза больше альвеолярной, а у жидкомолочных эти объемы почти одинаковы. Наоборот, альвеолярная порция у жирномолочных коров в 2-2,5 раза меньше, чем у жидкомолочных. Оказалось также, что чем выше удой, тем больше процент цистернальной порции.
Наши исследования внутривыменного давления перед дойкой и его изменений под влиянием стимуляции молокоотдачи, а также литературные данные по этому вопросу позволяют сделать следующие обобщения. Давление пропорционально количеству молока в железе и отражает степень ее заполнения. В то же время оно имеет значительные колебания у одних и тех же коров от дойки к дойке.
Под влиянием стимуляции внутривыменное давление заметно повышается. Рефлекторное сокращение миоэпителия альвеол обеспечивает быстрое изгнание секрета в цистерну железы, расширяет сосковую цистерну и облегчает раскрытие соокового канала, возможно, через рефлекторное расслабление сфинктера. Однако сила отрицательного давления под соском примерно в 10 раз превышает положительное давление в цистерне соска (380:36) в начале дойки и еще больше в конце. Поэтому основное значение внутривыменного давления и его повышения после стимуляции молокоотдачи сводится к быстрому заполнению цистерны железы и соска молоком, которое затем извлекается при сосании или доении. Для более полного опорожнения альвеолярной зоны вымени весьма существенно, чтобы скорость доения соответствовала интенсивности молокоотдачи.
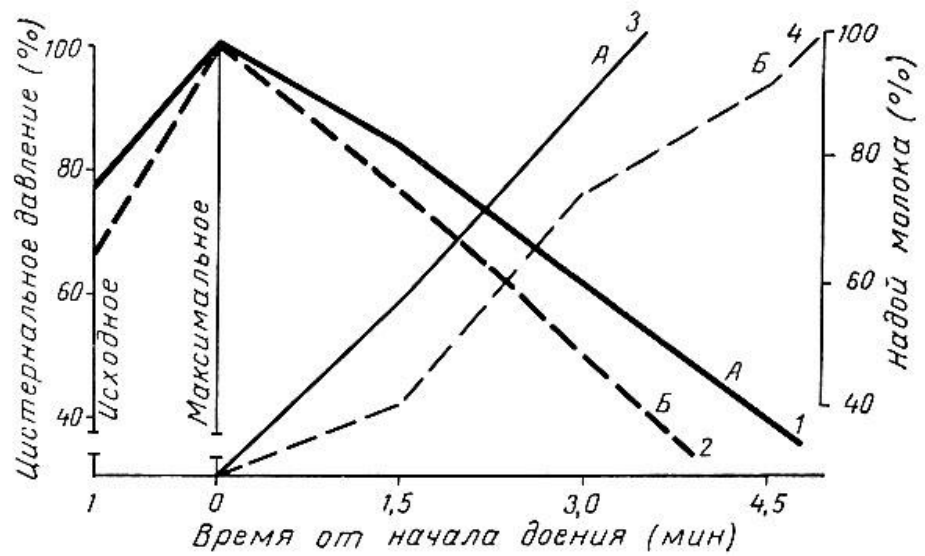
Внутрицистернальное давление в начале дойки уменьшается медленно, а к концу ее быстро (рис. 8), соответственно снижается и скорость молокоотдачи. Однако снижение давления в цистерне отстает от темпа опорожнения вымени. Благодаря этому поддерживается интенсивная молокоотдача. Перекрест линий давления и процента выдоенного молока у первотелок отмечен раньше при 70%, у коров второй лактации позже - при 60% выдоенности, что обусловлено различиями их удоев.
По мере выдаивания и снижения давления спадается кожа цистерны и сосков вымени. Наличие невыдоенного молока в отдельных четвертях легко установить прощупыванием цистерны.
Сосковый канал и сфинктер оказывают сильное влияние на скорость молокоотдачи. Растяжимость канала-соска зависит от строения кончика соска, объема и соотношения гладких мускулов и эластичных волокон соединительной ткани, а также от тонуса сфинктера. Перечисленные свойства наследственные и в разных сочетаниях обусловливают степень тугодойности
или легкодойности коров. Диаметр соскового канала с возрастом коров увеличивается, отчего повышается и скорость молокоотдачи.
У отдельных коров со слабым сфинктером еще до начала дойки наблюдается непроизвольное истечение молока. Это существенный дефект, при котором происходит потеря продукции.
У тугодойных коров замедленно выделяется альвеолярная порция молока, отчего нередко увеличивается объем резидуальной порции, сокращается продолжительность лактации и снижаются удои. На выдаивание таких коров требуются большие затраты труда и времени.
Резидуальное, или остаточное, молоко, извлекаемое по окончании нормальной дойки после введения 18-20 не окситоцина, регулярно депонируется и является причиной колебаний удоя и жирности молока по дойкам за день, за смежные сутки и за всю лактацию коров. Количество резидуального молока и жира -наследственный признак и у разных коров составляет от 5 до 25% и более общего удоя. Объем остаточного молока изменяется в ходе лактации и от продолжительности интервалов между дойками, и его количество пропорционально удою. Увеличение количества остаточного молока характеризует торможение молокоотдачи или полноту выдаивания, снижает продуктивность коров. Массовые определения остаточного молока пока затруднительны и в селекции не используются. Однако при исследованиях емкости вымени и колебаний скорости молокоотдачи, скорости секреции и состава молока при различных интервалах доек определять его необходимо.
