
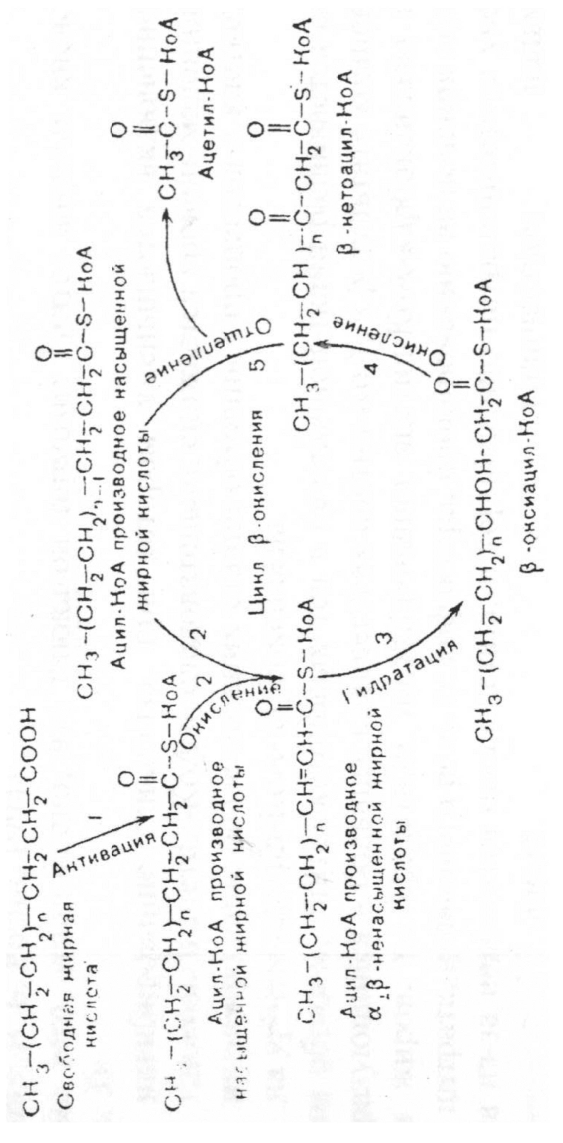
Схема окисления жирных кислот в гепатоците (по P. M. Кону, 1986)
И наоборот, при использовании всего ацетил-КоА, образованного из глюкозы, содержание малонил-КоА понижается, что, в свою очередь, облегчает работу системы КАТ I — КАТ II, осуществляющей перенос КоА-производных жирных кислот в митохондрии для их β-окисления до ацетил-КоА. Факторы, регулирующие кетоз, представлены на рисунке 4.
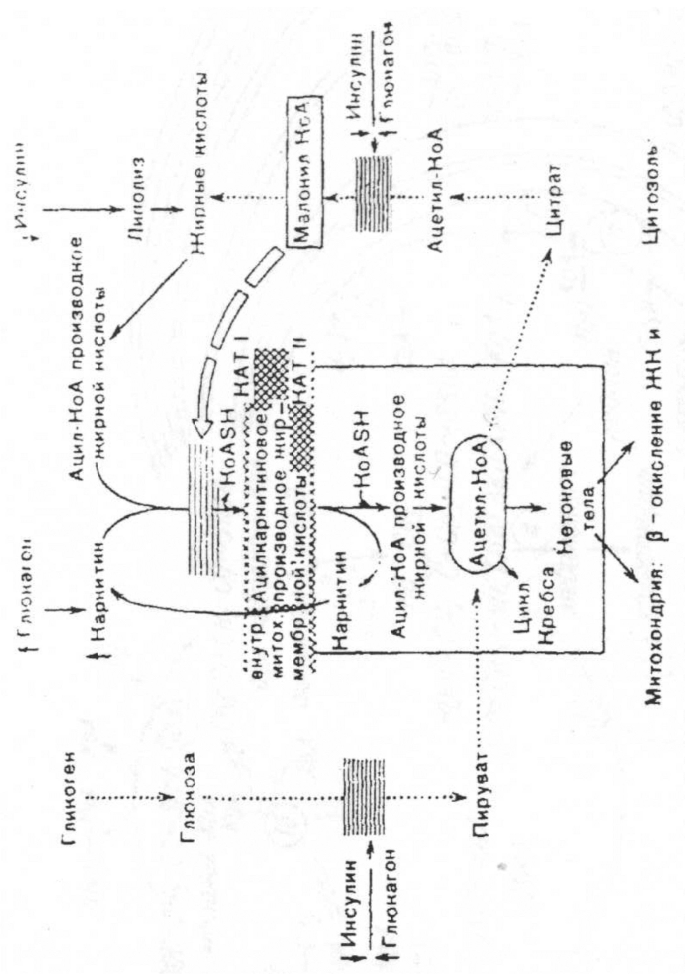
Факторы, регулирующие кетоз. КАТ I и II — ферменты карнитинацилтрансфераза I и II (по P. M. Кону, 1986)
Падение концентрации глюкозы в крови связано также с действием инсулина, который ускоряет поступление глюкозы в клетки и ее последующую деградацию (Г. И. Косицкий, 1985; В. Б. Розин, 1994).
Кроме того, установлено, что глюкагон тормозит синтез жирных кислот на двух уровнях (рис. 5):
1) ингибирование гликолиза, при котором уменьшается включение углерода глюкозы в ацетил-КоА и, следовательно, снижается уровень малонил КоА;
2) ингибирование более поздних стадий обменных процессов в клетке, вероятно, на уровне ацетил-КоА-карбоксилазы.
Рис. 5
Регуляция кетогенеза глюкагоном и малонил-КоА
Регуляция кетогенеза глюкагоном и малонил-КоА представлена на рисунке 3.
Таким образом, синтез кетоновых тел в печеночной ткани развивается следующим образом. Образующийся в большом количестве ацетил-КоА в результате компенсаторного расщепления жиров не способен полностью использоваться в ЦТК из-за недостатка ЩУК, а также из-за торможения участвующего в этом процессе «пускового» фермента (цитратсинтетазы) увеличенным ко-
