
вполне объяснимо, косвенно отражая напряжённость обмена веществ.
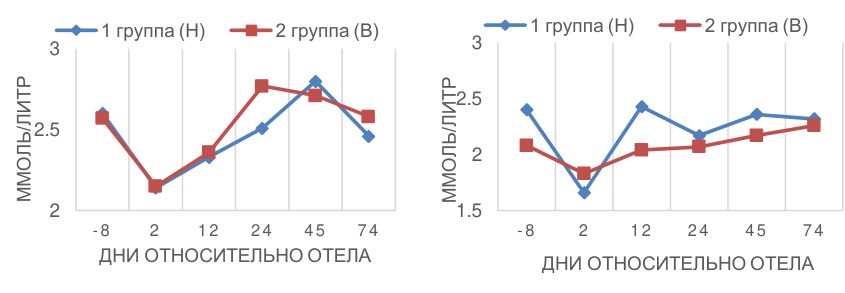
Ca и P. Обеспеченность этими веществами имеет особое значение в минеральном обмене высокопродуктивных коров. Их концентрация к отелу резко снижается и восстанавливается до физиологического уровня по кальцию на 24–45-й день и фосфору на 12-й день после родов (рисунок 10).
1 группа (Н) 2 группа (В) 1 группа (Н) 2 группа (В)
3 3
2.5
2.5
2
2 1.5
- 8 2 12 24 45 74 - 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ОТЕЛА
ДНИ ОТНОСИТЕЛЬНО ОТЕЛА
ММОЛЬ/ЛИТР ММОЛЬ/ЛИТР
Рисунок 10 – Концентрация Са (слева) и Р (справа) в крови коров в преди послеотельный периоды при пониженном (Н) и высоком (В) уровне концентратов белка в рационе
В 1 кг молозива и молока содержится 2,5 и 1,5 г Ca, соответственно. Кальций играет важнейшую роль в регуляции – в деятельности нервной и мышечной систем, фосфор энергетическом обмене как компонент АТФ, оба элемента составляют костную ткань. Избыточное количество фосфора отрицательно сказывается на усвоении Ca в желудочно-кишечном тракте. Гипокальцемия возникает при недостатке кальция (Ca) и избытке в рационе фосфора (Р), и приводит к тяжелому заболеванию – нервнопаралитическому родильному парезу. Оптимальная концентрация Ca находится в пределах 2,5–3,8 ммоль/л сыворотки, фосфора 1,4–2,3 ммоль/л. Следует отметить, что концентрация Ca до 12-го дня была ниже допустимого предела, с 24-го дня достигла нижний предел нормы – 2,5 ммоль/л и в последующие дни не превышала уровень 2,8 ммоля/л. В то же время концентрация фосфора, наоборот, всегда превышала норму (даже в дни родов), достигая своего пика за 8 дн до отела и на 12-й день после. И это несмотря на то, что в рационы не включали минеральные фосфорсодержащие добавки, и количество кальция балансировали за счет добавок мела на уровне 1,5 и более нормы.
Поэтому, отработка оптимального балансирования рационов по Ca и Р остается актуальной.
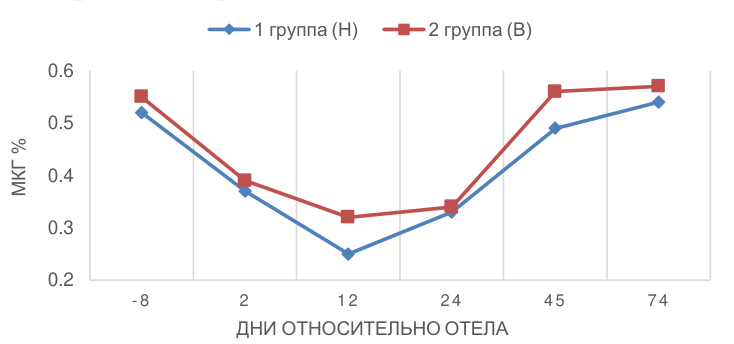
Каротин. Концентрация каротина снижалась до 12-го дня послеродового периода и постепенно восстанавливалась к 45 дню (рисунок 11). Такая динамика объясняется, прежде всего, его интенсивным расходом на продукцию молока и недостаточным в из-за пониженного поступлениям переходный период потребления коровами кормов.
1 группа (Н) 2 группа (В)
0.6
0.5
0.4
0.3
0.2
- 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ОТЕЛА
МКГ %
Рисунок 11 – Концентрация каротина в крови коров в пред- и послеотельный периоды при пониженном (Н) и высоком (В) уровне белка в рационе
Таким образом, становится абсолютно очевидной актуальность изучения процессов, происходящих в организме коров в переходный период и пик лактации, и разработки вопросов кормления, направленных на снижение стрессов в обмене веществ и сохранение высокой продуктивности и жизнеспособности коров.
6 ОБМЕН АМИНОКИСЛОТ И ИХ ДИНАМИКА В ПЕРЕХОДНЫЙ ПЕРИОД И ПИК ЛАКТАЦИИ
аминокислот в плазме Концентрацию крови следует рассматривать как результат нескольких факторов: а) уровня и качества белкового питания; б) физиологического состояния животных; в) взаимодействия процессов всасывания и обмена аминокислот в пищеварительном тракте, интенсивности процессов обмена аминокислот в печени и других внутренних органах, биосинтеза белка молока и обмена аминокислот в молочной железе; г) взаимодействия аминокислотного, углеводного и жирового обменов.
В соответствие с концепцией гомеорезиса (координация метаболизма) метаболическим приоритетом в ранней лактации коров является синтез молока. Поэтому потоки питательных веществ при недостатке корма в послеотельный период будут направляться, прежде всего, в молочную железу. Гомеорезис регулируется нервной и гормональной системой.
Для эффективного синтеза белка молока необходимо одновременное наличие в молочной железе всех аминокислот, составляющих белок молока. Концепция множества лимитирующих аминокислот в одно и то же время отражает важность изменения концентрации каждой аминокислоты в крови на продукцию молочного белка.
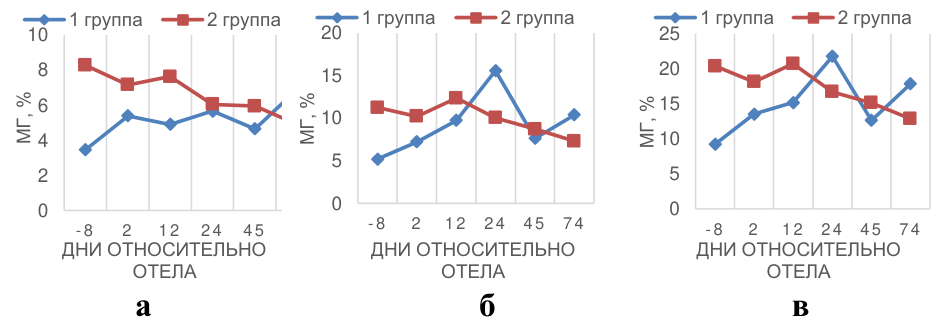
Сумма незаменимых и заменимых аминокислот . У коров из 2-й группы на рационе с более высоким содержанием обменного белка (96,2 против 79 г/кг СВ) концентрация суммы свободных аминокислот в плазме крови за 8 дн до родов оказалась в 2,2 раза выше, чем у коров из 1-й, что в целом несоизмеримо с разницей по количеству потребляемого белка (рисунок 12).
1 группа 2 группа 1 группа 2 группа 1 группа 2 группа
10 20 25
8 15 20
6 15
10
4 10
5
2 5
0 0 0
- 8 2 12 24 45 - 8 2 12 24 45 74 - 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ДНИ ОТНОСИТЕЛЬНО ДНИ ОТНОСИТЕЛЬНО
ОТЕЛА ОТЕЛА ОТЕЛА
а б в
МГ, % МГ, % МГ, %
Рисунок 12 – Динамика концентрации суммы незаменимых (НАК) и заменимых (ЗАК) аминокислот в плазме крови по фазам переходного периода, n = 5: а – сумма НАК; б – сумма ЗАК; в – общая сумма НАК+ЗАК
столь Причина существенной разницы, по-видимому объясняется следующим: при равных затратах обменного белка у коров обеих групп на поддержание и беременность, в рационе 1-й группы содержание обменного белка было предельным (даже с незначительным недостатком – 4,9 %), в то время как в рационе 2-й группы – излишек ОБ составил 17,4 % (см. таблицу 11). У коров
