
желчных кислот, гиппуровой кислоты, пуринов, глютатиона, креатина, креатинфосфата. В глюконеогенезе он используется в результате серий реакций образования пирувата и ацетил – КоА. Кроме того, в организме коров он является не только донором метильных, но и аминных групп в синтезе заменимых аминокислот.
6.1 Кинетика концентраций отдельных заменимых аминокислот
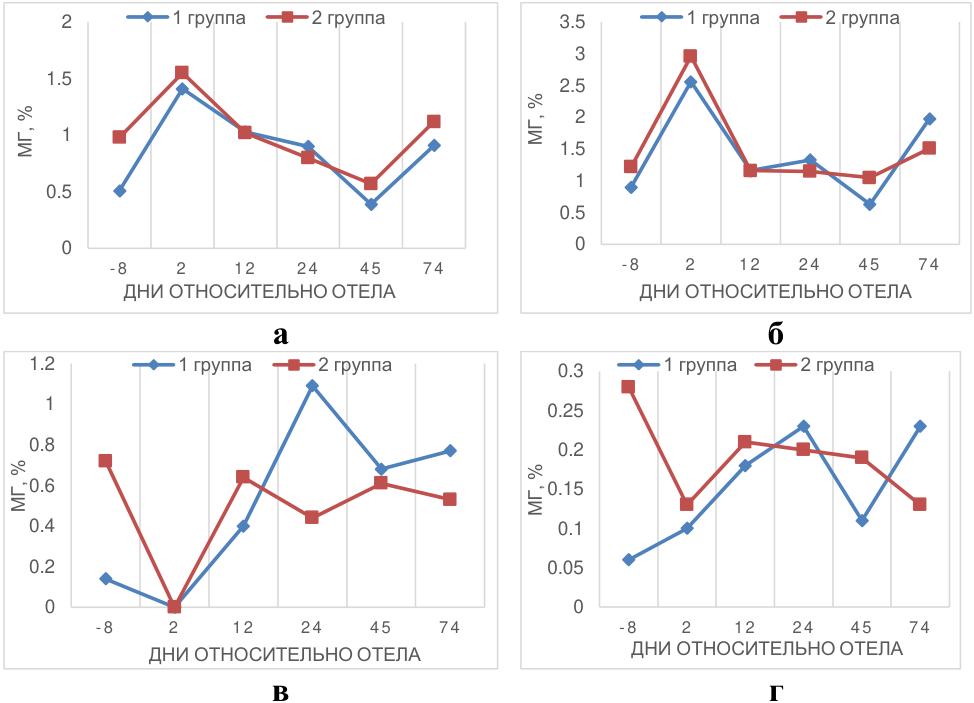
Глютамин, глютамат, аспартат. Установлено, что почти 100 % глютамина, глютамата и аспартата корма метаболизируется в клетках кишечника в процессе всасывания еще до того, как они поступят в циркулирующую кровь, и что эти аминокислоты кишечник использует в качестве источников энергии (топлива) [131, 224]. Этим можно объяснить очень низкую концентрацию аспарагина и полное отсутствие аспартата в плазме крови коров обеих групп (рисунок 19, приложение В).
В то же время, потребность в этих аминокислотах для синтеза молока высокая. На аспартат и глютамат приходится 24 % аминокислотных остатков белка молока. Следовательно, эти аминокислоты должны в большом количестве синтезироваться в печени, молочной железе или освобождаться из деградируемых белков тела.
Для синтеза глютамина, глютамата и аспартата в печени нужны вещества, которые могут обеспечить как минимум тремя углеродными скелетами. Вероятными кандидатами для этого могут быть пропионат, глюкоза, незаменимые и заменимые аминокислоты. Было установлено, что глюкоза делает незначительный (3–9 %) вклад в синтез аспартата, глютамата и глютамина, и что пролин образуется исключительно из катаболизируемого аргинина, а не из глютамата. При этом найдено, что 79–95 % глютамата и глютамина и 64–84 % аспартата в молочной железе из синтезируется катаболизированных треонина, валина и изолейцина. Эти аминокислоты поступают в молочную железу в избытке.
2 1 группа 2 группа 3.5 1 группа 2 группа
3
1.5
2.5
2
1
1.5
1
0.5
0.5
0 0
- 8 2 12 24 45 74 - 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ОТЕЛА ДНИ ОТНОСИТЕЛЬНО ОТЕЛА
а б
1.2 1 группа 2 группа 0.3 1 группа 2 группа
1
0.25
0.8 0.2
0.6 0.15
0.4 0.1
0.2 0.05
0 0
- 8 2 12 24 45 74 - 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ОТЕЛА ДНИ ОТНОСИТЕЛЬНО ОТЕЛА
в г
МГ, %
МГ, %
МГ, % МГ, %
Рисунок 19 – Динамика концентрации глютамата, глютамина, пролина и аспарагина в плазме крови по фазам предотельного и послеотельного периодов, n = 5:
а – глютамат; б – глютамин; в – пролин; г – аспарагин
Кроме того, обнаружено, что большая часть галактозы в лактозе (от 46 до 86 %) синтезированы из неглюкозных углеродных скелетов, точнее из незаменимых аминокислот и глицерола, при этом от 10 до 42 % галактозы происходит из глицерола, 4–12 % которого образовано из катаболизированых незаменимых аминокислот [133].
В наших опытах наблюдается резкий всплеск концентрации глютамина и глютамата в плазме коров обеих групп на 2-й день после отела. Вместе с тем, на 2-й день происходит резкое снижение в крови концентрации серина, аланина, пролина, аспарагина (2-я группа), что, вероятнее всего связано с возросшей активностью глюконеогенеза из перечисленных аминокислот для синтеза лактозы или потребностью на синтез белка молока. На 12-й день концентрация глютамина так же резко снижается до предотельного уровня, в то время как снижение глютамата происходит
постепенно, что так же объясняется высоким оттоком этих аминокислот в молочную железу и их утилизацией на синтез белка или лактозы возрастающего надоя молока. Однако найти объяснение причин всплеска их концентрации на 2-й день после родов представляется неоднозначным. Можно полагать, что такие всплески происходят в результате повышенной экскреции в кровь гормонов. Например, кортизол, гормон коркового слоя надпочечников резко возрастает в крови в день родов и так же резко снижается сразу после родов. К родам увеличивается в крови концентрация глюкагона, деятельность которого направлена на гликолиз гликогена, т.е. освобождение из гликогена глюкозы для поддержания необходимого ее уровня, который, как правило, снижается в послеродовой период. Возможно всплеск в крови глютамата и глютамина, являющихся потенциальными донорами углеродных скелетов в глюконеогенезе, связан с действием глюкагона и глюкокортикоидов на обмен глюкозы.
Пролин. Крутые падения в крови пролина (рисунок 19 в, приложение В), возможно связаны с резким его расходом, в первые послеотельные дни, на синтез белка молозива. В молозиве содержится более 15 % белка, а количество пролина в белке довольно высокое – 8,5 %. Пролин в основном образуется из аргинина, причем его биосинтез является ограниченным по сравнению с биосинтезом глютаминовой кислоты. По-видимому, на организацию биосинтеза пролина требуется больше времени, чем на другие заменимые аминокислоты, поэтому в первые дни после родов его концентрация оказывается неровной.
Инфузия пролина в дуоденум в начале лактации способствовала повышению жира в молоке, а введение в середине лактации – содержанию белка. В исследовании было обнаружено, что вливание пролина снижает на 40–50 % поглощение аргинина молочной железой [141]. Полученные материалы по концентрации аминокислот в плазме крови, нелегко увязать с вышеназванными факторами. Однако, процессы рубцовой ферментации кормов у жвачных идут биосинтез белков молока также беспрерывно, происходит беспрерывно в течение суток, можно полагать, что полученные данные позволят найти взаимосвязи с некоторыми из
