
В соответствие с концепцией гомеорезиса (координация метаболизма) метаболическим приоритетом в ранней лактации коров является синтез молока. Поэтому потоки питательных веществ при недостатке корма в послеотельный период будут направляться, прежде всего, в молочную железу. Гомеорезис регулируется нервной и гормональной системой.
Для эффективного синтеза белка молока необходимо одновременное наличие в молочной железе всех аминокислот, составляющих белок молока. Концепция множества лимитирующих аминокислот в одно и то же время отражает важность изменения концентрации каждой аминокислоты в крови на продукцию молочного белка.
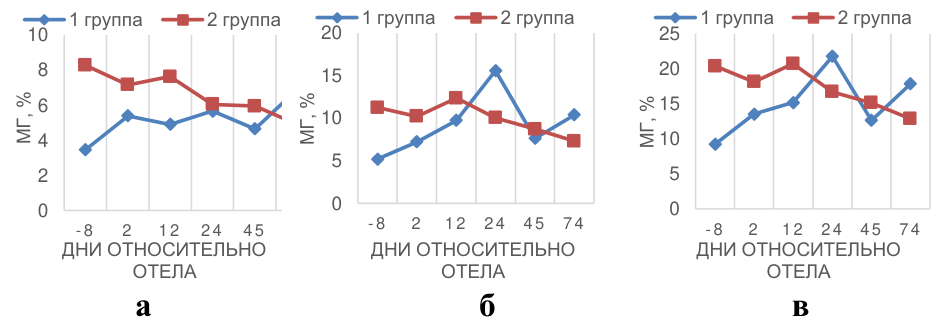
Сумма незаменимых и заменимых аминокислот . У коров из 2-й группы на рационе с более высоким содержанием обменного белка (96,2 против 79 г/кг СВ) концентрация суммы свободных аминокислот в плазме крови за 8 дн до родов оказалась в 2,2 раза выше, чем у коров из 1-й, что в целом несоизмеримо с разницей по количеству потребляемого белка (рисунок 12).
1 группа 2 группа 1 группа 2 группа 1 группа 2 группа
10 20 25
8 15 20
6 15
10
4 10
5
2 5
0 0 0
- 8 2 12 24 45 - 8 2 12 24 45 74 - 8 2 12 24 45 74
ДНИ ОТНОСИТЕЛЬНО ДНИ ОТНОСИТЕЛЬНО ДНИ ОТНОСИТЕЛЬНО
ОТЕЛА ОТЕЛА ОТЕЛА
а б в
МГ, % МГ, % МГ, %
Рисунок 12 – Динамика концентрации суммы незаменимых (НАК) и заменимых (ЗАК) аминокислот в плазме крови по фазам переходного периода, n = 5: а – сумма НАК; б – сумма ЗАК; в – общая сумма НАК+ЗАК
столь Причина существенной разницы, по-видимому объясняется следующим: при равных затратах обменного белка у коров обеих групп на поддержание и беременность, в рационе 1-й группы содержание обменного белка было предельным (даже с незначительным недостатком – 4,9 %), в то время как в рационе 2-й группы – излишек ОБ составил 17,4 % (см. таблицу 11). У коров
1-й группы поступающие из пищеварительного тракта аминокислоты, по-видимому, быстро уходили на нужды тканей матери и плода и их пул в крови оказывался более ограниченным, чем у коров 2-й группы, получивших более обильный по аминокислотам рацион. Этим можно объяснить предельно низкий уровень свободных аминокислот в крови коров 1-й группы и значительно более высокий у коров 2-й. Более высокая концентрация суммы незаменимых аминокислот в плазме крови последней группы сохранялась до 45-го дня. На 74-й день в плазме крови 1-й группы уровень НАК превысил таковую во 2-й (рисунок 12 а).
Уже на 12-й день после родов концентрация суммы незаменимых и заменимых аминокислот в плазме коров 1-й группы сравнивается с показателями 2-й группы и существенно продолжает нарастать до 24 дня (рисунок 12 в; приложение В). Это превышение происходило в основном, за счет заменимых аминокислот – серина, глютамина, пролина, глицина и аланина. На долю последних (на 24-й день послеотелього периода) приходилось 75 % суммы заменимых и незаменимых аминокислот, в том числе на глицин – 50 %, аланин – 12 %, пролин – 4 %, глютамин – 4 %, серин – 5 %. В крови коров 2-й группы концентрация заменимых аминокислот, в этот период наоборот, понижалась (рисунок 12 б).
Метаболизм у жвачных направлен на поддержание уровня глюкозы. Установлено, что вклад углерода аминокислот в глюконеогенез, определенный по балансу радиоактивных веществ, проходящих через печень, составлял от 12 до 35 %.
В раннюю лактацию, когда потребность в глюкозе для синтеза лактозы является наивысшей, а снабжение пропионатом ограничено, из-за недостаточного потребления корма, использование аминокислотного углерода в глюконеогенезе является, по-видимому, жизненно важным. Установлено, что вклад пропионата в глюконеогенез максимально составляет 37 %, а вклад аминокислот минимально 34 % [131].
Аминокислоты, которые используются на глюконеогенез в печени, катаболизируется в цикле Кребса до пирувата, оксалоацетата, суцинил – КоА или α – кетоглютарата. Основным
вкладчиком в образование оксалоацетата является аспартат, который синтезируется из незаменимых аминокислот.
6.1 Кинетика концентраций отдельных
незаменимых аминокислот
Если сравнить количество каждой потреблённой обменной аминокислоты с их концентрацией в плазме крови, то можно отметить плохую корреляцию между ними (таблица 18).
Концентрация каждой незаменимой аминокислоты в плазме крови коров из 2-й группы в предотельный период, превышала с высокой достоверностью (Р < 0,01–0,001) концентрацию соответствующих аминокислот у коров из 1-й группы, за исключением метионина и цистеина, уровень которых в крови коров обеих групп практически был одинаковым (рисунок 13; приложение В).
Таблица 18 – Потребление усвояемых (обменных) аминокислот по фазам переходного периода, г/суточный рацион
| Аминокислота | 21–0 дн | 0–21 дн | 22–120 дн | |||
|---|---|---|---|---|---|---|
| г/сут. рацион | г/сут. рацион | г/сут. рацион | ||||
| 1-я группа | 2-я группа | 1-я группа | 2-я группа | 1-я группа | 2-я группа | |
| Незаменимые | ||||||
| Аргинин | 44,4 | 58,5 | 86 | 96,3 | 105,2 | 115 |
| Гистиин | 18,5 | 23,8 | 34,8 | 38,7 | 39,7 | 42,9 |
| Изолейцин | 43,6 | 53,2 | 78,2 | 85 | 89,5 | 95,5 |
| Лейцин | 63,6 | 78,5 | 110,4 | 120 | 133,2 | 142,6 |
| Лизин | 54,1 | 66,6 | 93,6 | 101,6 | 112,1 | 120,1 |
| Метионин | 17,3 | 21 | 29,8 | 32,2 | 35,8 | 38,2 |
| Фенилаланин | 40,2 | 50,2 | 69,3 | 75,4 | 83,3 | 89,3 |
| Треонин | 38,6 | 46,9 | 66,2 | 71,4 | 79,2 | 84,5 |
| Триптофан | 8,8 | 11,1 | 14,9 | 16,2 | 17,8 | 19,2 |
| Валин | 47,7 | 57,7 | 81,6 | 88 | 97,8 | 104,2 |
| Заменимые | ||||||
| Аспарагин. кислота | 56,9 | 76,7 | 105,9 | 118,8 | 129,4 | 141,4 |
| Серин | 26,8 | 36,7 | 50,3 | 57,0 | 63,0 | 69,1 |
| Глютаминовая кислота | 85,6 | 120,5 | 168,1 | 192,3 | 209,0 | 231,2 |
| Пролин | 54,4 | 68,5 | 98,5 | 108,4 | 119,8 | 129,2 |
| Глицин | 53,6 | 65,3 | 95,0 | 103,4 | 114,7 | 122,8 |
| Аланин | 34,0 | 41,2 | 58,9 | 64,1 | 72,6 | 77,4 |
