
вкладчиком в образование оксалоацетата является аспартат, который синтезируется из незаменимых аминокислот.
6.1 Кинетика концентраций отдельных
незаменимых аминокислот
Если сравнить количество каждой потреблённой обменной аминокислоты с их концентрацией в плазме крови, то можно отметить плохую корреляцию между ними (таблица 18).
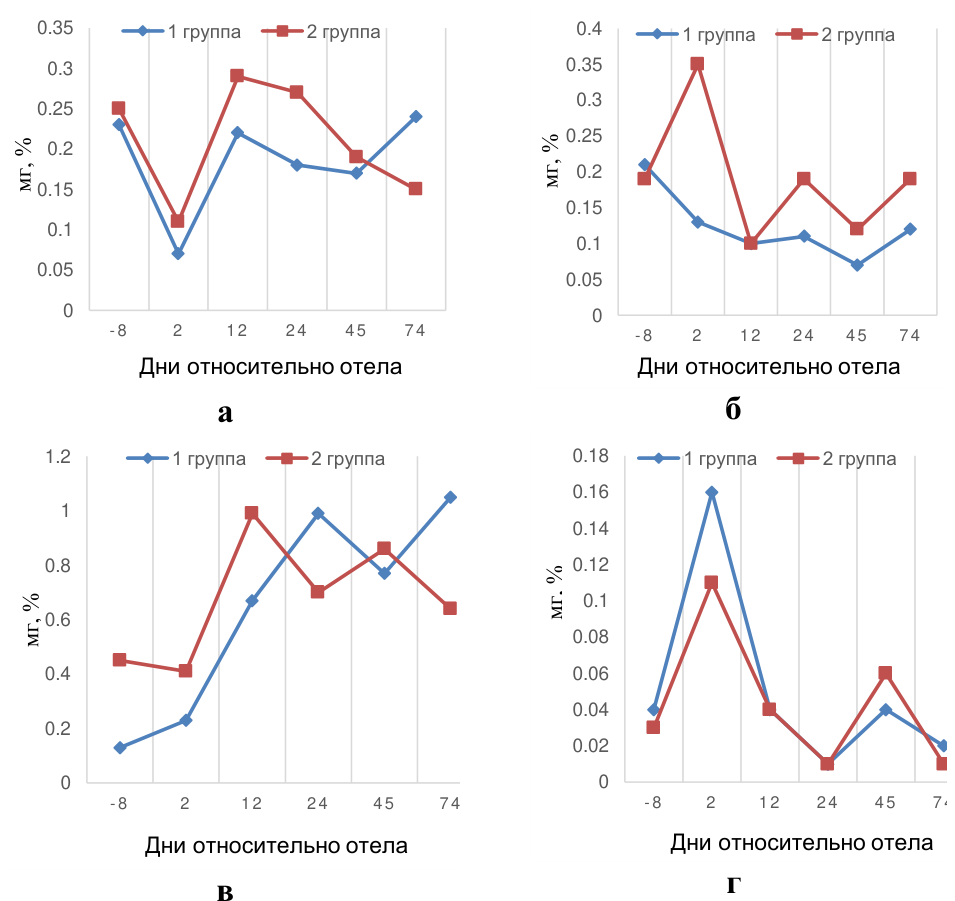
Концентрация каждой незаменимой аминокислоты в плазме крови коров из 2-й группы в предотельный период, превышала с высокой достоверностью (Р < 0,01–0,001) концентрацию соответствующих аминокислот у коров из 1-й группы, за исключением метионина и цистеина, уровень которых в крови коров обеих групп практически был одинаковым (рисунок 13; приложение В).
Таблица 18 – Потребление усвояемых (обменных) аминокислот по фазам переходного периода, г/суточный рацион
| Аминокислота | 21–0 дн | 0–21 дн | 22–120 дн | |||
|---|---|---|---|---|---|---|
| г/сут. рацион | г/сут. рацион | г/сут. рацион | ||||
| 1-я группа | 2-я группа | 1-я группа | 2-я группа | 1-я группа | 2-я группа | |
| Незаменимые | ||||||
| Аргинин | 44,4 | 58,5 | 86 | 96,3 | 105,2 | 115 |
| Гистиин | 18,5 | 23,8 | 34,8 | 38,7 | 39,7 | 42,9 |
| Изолейцин | 43,6 | 53,2 | 78,2 | 85 | 89,5 | 95,5 |
| Лейцин | 63,6 | 78,5 | 110,4 | 120 | 133,2 | 142,6 |
| Лизин | 54,1 | 66,6 | 93,6 | 101,6 | 112,1 | 120,1 |
| Метионин | 17,3 | 21 | 29,8 | 32,2 | 35,8 | 38,2 |
| Фенилаланин | 40,2 | 50,2 | 69,3 | 75,4 | 83,3 | 89,3 |
| Треонин | 38,6 | 46,9 | 66,2 | 71,4 | 79,2 | 84,5 |
| Триптофан | 8,8 | 11,1 | 14,9 | 16,2 | 17,8 | 19,2 |
| Валин | 47,7 | 57,7 | 81,6 | 88 | 97,8 | 104,2 |
| Заменимые | ||||||
| Аспарагин. кислота | 56,9 | 76,7 | 105,9 | 118,8 | 129,4 | 141,4 |
| Серин | 26,8 | 36,7 | 50,3 | 57,0 | 63,0 | 69,1 |
| Глютаминовая кислота | 85,6 | 120,5 | 168,1 | 192,3 | 209,0 | 231,2 |
| Пролин | 54,4 | 68,5 | 98,5 | 108,4 | 119,8 | 129,2 |
| Глицин | 53,6 | 65,3 | 95,0 | 103,4 | 114,7 | 122,8 |
| Аланин | 34,0 | 41,2 | 58,9 | 64,1 | 72,6 | 77,4 |
| Цистеин | 10,2 | 13,2 | 18,3 | 20,2 | 22,3 | 24,2 |
| Тирозин | 34,4 | 42,6 | 60,9 | 66,7 | 74,3 | 79,8 |
| Суточное потребление СВ, кг | 10,67 | 10,67 | 16 | 16 | 19,5 | 19,5 |
Метионин считается наиболее лимитирующей аминокислотой у лактирующих коров. Основная роль метионина (помимо обязательного компонента белков тела и молока) состоит в инициации трансляции биосинтеза белков в качестве метиониновой инициирующей транспортной РНК (Мет-тРНК), он является донором метильных групп, предшественником цистеина, карнитина, глютатиона.
0.35 1 группа 2 группа 0.4 1 группа 2 группа
0.3 0.35
0.3
0.25
0.25
0.2
0.2
0.15
0.15
0.1
0.1
0.05
0.05
0 0
- 8 2 12 24 45 74 - 8 2 12 24 45 74
Дни относительно отела Дни относительно отела
а б
1.2 1 группа 2 группа 0.18 1 группа 2 группа
0.16
1
0.14
0.8 0.12
0.1
0.6
0.08
0.4 0.06
0.04
0.2
0.02
0 0
- 8 2 12 24 45 74 - 8 2 12 24 45 74
Дни относительно отела Дни относительно отела
г
в
мг, % мг, %
мг, %
мг, %
Рисунок 13 – Динамика концентрации серусодержащих аминокислот в плазме крови по фазам предотельного и послеотельного периодов, n = 5:
а – метионин; б – цистеин; в – таурин; г – цистатионин
Почему уровень метионина в крови коров 1-й группы при существенно меньшем его потреблении оказывается на уровне концентрации коров 2-й группы? В рационе 1-й группы количество усвояемого метионина практически соответствовало потребности, в то время как в рационе 2-й на 23,8 % выше нормы. Не исключено, что метионин во 2-й группе как сверх излишний, более интенсивно катаболизировался и через цистеин превращался в таурин, концентрация которого в предродовой период в крови коров этой группы была выше почти в 3,5 раза.
Похожие результаты получили датские ученые на голштинских коровах по изучению действия добавок в рационе аналога метионина (2-гидрокси-4-(метилтио)-бутановой кислоты эфира изопропила) в предотельный и послеотельный периоды. В соответствие с методикой авторов, брали кровь до утреннего кормления у коров за 15 дней до родов, на 4, 15 и 29 дни после родов, т. е. аналогично, как в наших опытах. Добавка аналога, эквивалентная 1,5 г метионина / кг CВ рациона, не оказала влияния на повышение концентрации свободного метионина в плазме крови по сравнению с тем, у контрольных животных (она была даже ниже, чем в контроле), но в послеотельный период она существенно повышала концентрацию метионина в крови на 4-й, 15-й и 29-й дни. Авторы этого исследования объясняют низкий расход метионина за счет, высокой концентрации в крови аланина, глицина и гистидина, которые в полной мере могли заменить функции метионина как донора метильных групп. По-видимому, равный уровень метионина в обеих группах нашего опыта, также можно объяснить аналогичными условиями.
На 2-й день после отела концентрация метионина в плазме крови коров обеих групп резко падает, в то же время существенно повышается концентрация продуктов его деградации – цистеина у коров 2-й группы, цистатионина – 1-й.
На 12-й день концентрация метионина восстанавливается до предотельного уровня, одновременно снижается концентрация цистеина и цистатионина, однако параллельно с этим повышается концентрация таурина, предшественником которого является
