
гии (20 МДж : 0,62) к потребности в обменной энергии на производство молока.
Затраты обменной энергии корма на образование 1 кг молока во многом зависят от концентрации обменной энергии в сухом веществе рациона. В связи с этим нормативные затраты сверх под держивающей обменной энергии на синтез молока выглядят сле дующим образом (табл. 116).
116. Нормы обменной энергии на синтез молока (по Н.Г. Григорьеву и др.)
| Концентрация ОЭ | Требуется ОЭ рациона | |
|---|---|---|
| в рационе, МДж/кг СВ | на 1 МДж молока | на 1 кг молока |
| 9,0 | 1,95 | 5,85 |
| 9,5 | 1,85 | 5,55 |
| 10,0 | 1,75 | 5,25 |
| 10,5 | 1,67 | 5,01 |
| 11,0 | 1,59 | 4,77 |
Потребность в энергии у лактирующих свиноматок слагает ся из потребности на поддержание жизни (ОЭП составляет 439 кДж · W0,75 в сутки), на синтез молока (8 МДж на синтез 1 кг молока с учетом эффективности (0,65) использования энер гии). При этом необходимо учитывать дополнительное поступ ление энергии на синтез молока за счет использования липидов подкожной жировой ткани. При потере 1 кг жировой ткани выделяется 46,4 МДж обменной энергии, эффективность ис пользования которой равна 0,85.
Расчет потребности в обменной энергии для лактирующих свиноматок представлен в табл. 117.
8.2. ПОТРЕБНОСТЬ В ПРОТЕИНЕ
Нормирование протеинового питания основывается на определении потребности животных в количестве биологически полноценно го, доступного для усвоения белка, необходимого для удовлетворения потребностей организма на поддержание и синтез продукции. Исключительно важна роль полноценного протеинового питания в кормле нии молодняка всех видов животных и воспроизводящего поголовья.
117. Факториальная оценка потребности лактирующих свиноматок в энергии (по Г.А. Богданову)
| Период лактации, нед. | Живая масса, кг | Поддержание жизни, МДж ОЭ/сут. | Молочная продуктив- ность, кг/сут. | Потребность для лактации, МДж/сут. | Потеря живой массы в сутки, кг | Поступление энергии за счет потери живой массы, МДж/сут. | Общая потребность, МДж/сут. |
|---|---|---|---|---|---|---|---|
| 1 | 159,1 | 19,7 | 5,1 | 40,8 | 0,13 | 6,2 | 54,3 |
| 2 | 157,8 | 19,5 | 6,5 | 52,0 | 0,18 | 8,3 | 63,2 |
| 3 | 166,4 | 19,4 | 7,1 | 56,8 | 0,20 | 9,5 | 66,7 |
| 4 | 154,9 | 19,3 | 7,2 | 57,6 | 0,20 | 9,5 | 67,4 |
| 5 | 153,5 | 19,1 | 7,0 | 56,0 | 0,21 | 9,5 | 65,5 |
| 6 | 152,2 | 19,0 | 6,6 | 52,8 | 0,18 | 8,3 | 63,5 |
| 7 | 151,0 | 18,9 | 5,7 | 45,6 | 0,18 | 8,3 | 56,2 |
| 8 | 150,0 | 18,8 | 4,9 | 39,2 | 0,14 | 6,6 | 51,0 |
Минимальные потребности животных в протеине рассчиты вают на основании следующих величин: 1) потерь усвоенного про теина из организма; 2) отложения протеина в организме в период роста тканей, стельности и лактации; 3) показателей эффектив ности использования протеина корма (рациона) при его превра щении в протеин тканей и продукцию.
Оценку потребности в протеине животных проводят двумя методами — факториальным и эмпирическим. Определение пока зателя биологической полноценности протеина корма, от кото рого зависит количественное выражение потребности в нем, пред ставляет большие методические трудности из-за особенностей обмена веществ у разных видов животных.
Для свиней биологическая ценность протеина определяется составом аминокислот и, прежде всего, незаменимых. В то же время для жвачных животных критерием биологической полно ценности протеина корма выступает не его аминокислотный со став, а, прежде всего, физические свойства (растворимость), определяющие его судьбу в рубце.
Исходя из этого, термин «биологическая ценность» ( ВV ) используется для обозначения усвоенного азота (за вычетом всех потерь)
в процентах от общего количества всосавшегося азота и может быть рассчитан по формуле
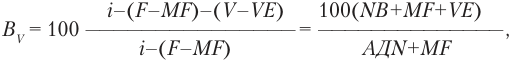
i –( F–MF )–( V–VE ) 100( NB+MF+VE )
BV = 100 ——————————————— = —————————————— ,
i –( F–MF ) АДN+MF
где i — азот, поступающий с кормом; F — общее количество азота в кале; МF — количество обменного азота в кале; V — общее количество азота в моче; VЕ — количество эндогенного азота в моче; NВ — баланс азота; АДN — видимо переваримый азот.
Потребность животных в протеине на поддержание жизни. Потребность в белке на поддерживающий обмен рассматривается как минимальное поступление кормового протеина определен ной биологической ценности при сохранении нулевого баланса азота в организме.
Для жвачных животных минимальное поступление 1 кормового протеина определяется неизбежными потерями азота с мочой, калом и через кожу.
Наиболее высоки эндогенные потери азота с мочой — 2,75 г на 1 кг массы тела в степени 0,5 или 0,938 г/сут./кг W0,75 . Эти потери представляют собой неизбежную «утечку» азота, явля ющуюся следствием обновления ферментов и тканей во всех органах тела.
Обменный азот кала определяется как азот кала, экскретируемый на 1 кг потребленного корма при содержании животных на безбелковом рационе. Эти потери складываются в результате не полного обратного всасывания азота, содержащегося в пищева рительных соках, а также отмирания эпителиальных клеток сте нок желудочно-кишечного тракта.
Обменный азот кала пропорционален потреблению сухого вещества корма (рациона) и составляет для жвачных животных 5 г азота, или 31,25 г белка на 1 кг потребленного сухого веще ства корма. Однако учитывая наличие в составе протеина кала непе реваренных и вновь синтезированных в толстом кишечнике мик робных клеток, обменный азот кала предложено считать в ко личестве 10 г на 1 кг потребленного сухого вещества корма.
Экзогенные потери, представляющие собой теряемый с шерстью и перхотью азот у крупного рогатого скота, составля ют 0,02 мг, или 0,125 г белка на 1 кг W0,75 .
Исходя из этого, потребность в протеине для крупного рога того скота и овец можно выразить следующей формулой:
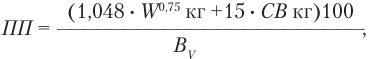
(1,048 · W 0,75 кг +15 · СВ кг)100
ПП = ———————————————————————,
BV
где ПП — потребность в протеине на поддержание, г/сут.; 1,048 · W0,75 кг — сумма неизбежных потерь с мочой и через
