
Снижение содержания клетчатки ниже 14 % сопровождается нарушением процессов пищеварения, изменением соотношения кислот брожения и снижением жира в молоке.
Использование животными азота рационов зависит от соот ношения фракций углеводов друг к другу и к протеину. Наиболь шие потери азота с мочой и калом наблюдаются на рационах, богатых протеином и клетчаткой, а минимальные — при высоком содержании сахара и крахмала.
При любом уровне протеина в рационе сахар способствует луч шему использованию азота животными. Крахмал и клетчатка име ют тесную, но противоположную связь с уровнем протеина: при его низком уровне с увеличением крахмала в теле животных возрастает отложение азота, а с увеличением клетчатки — снижается.
Усвоение образуемого в рубце аммиака наиболее сильно увеличивается при введении крахмала и более медленно — при введе нии целлюлозы; глюкоза и сахароза по влиянию на усвоение ам миака занимают промежуточное положение.
Оптимальное соотношение сахара и переваримого протеина в рационе коров колеблется от 0,6:1 до 1,5:1, сахара к крахмалу 1:1 и 1:2. Различия связаны с условиями кормления, а также с уров нем продуктивности коров.
Снижение сахаро-протеинового отношения до 0,4–0,6, так же как и повышение до 2,4 ведет к ухудшению усвоения питатель ных веществ, к изменениям в обмене веществ. Для балансирования сахаро-протеинового отношения в рационы животных включают корнеплоды или кормовую патоку (мелассу).
Потребность жвачных животных в сахаре и крахмале возрас тает при скармливании силоса, кислого жома, пивной дробины, барды, синтетических азотистых веществ.
Таким образом, всестороннее изучение углеводной питатель ности кормов имеет большое практическое значение не только для правильного их использования животными, но и для разра ботки приемов направленной агротехники выращивания расте ний, заготовки и приготовления кормов.
5.3. ЛИПИДНАЯ ПИТАТЕЛЬНОСТЬ КОРМОВ
Липидная питательность — свойство корма удовлетворять потребность организма животного в липидах. Жиры и жироподобные вещества, входящие в корма, называют липидами.
Липиды — широко распространенные в природе органические вещества, неотъемлемые компоненты живых клеток, тканей и жидкостей
организма. Они, как правило, нерастворимы в воде, характери зуются различной растворимостью в органических растворителях.
В живых организмах липиды выполняют ряд важных функций: входят в структуру мембран, составляют основу нервной ткани, аккумулируют и депонируют энергию, выполняют защитную роль, входя в состав наружного покрова животных, составляют основу ряда биологически активных веществ — гормонов, витаминов или непосредственно являются ими, служат источниками незамени мых жирных кислот. Кроме этого, липиды способствуют всасыва нию, транспорту и депонированию жирорастворимых витаминов.
Липидам присуще азотсберегающее свойство, в основе кото рого лежит уменьшение использования аминокислот для удов летворения потребности организма в энергии.
Исходя из функциональной роли, липиды делятся на две группы: структурные и резервные (рис. 6). Структурные липиды ( фосфолипиды, холестерин ) в комплексе с белками составляют основу мембран и клеточных структур органов и тканей животных. Содержание липидов в большинстве органов и тканей составляет 20–30 % сухой массы. Особенно много содержится липидов в нервной ткани. Резервные ли пиды ( триглицериды ) депонируются в жировых тканях животных.
Жиры отличаются высоким содержанием энергии: в 1 кг кормового животного жира в среднем содержится 36,42 МДж обменной энергии (для свиней и птиц), а в 1 кг раститель ного жира 35,8 МДж. Энергетическая ценность жиров для жвачных животных на 7–8 % ниже.
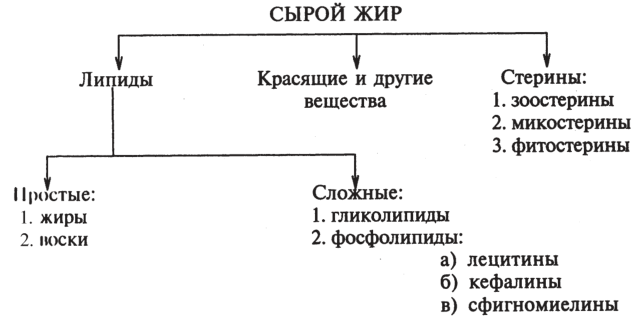
Жиры содержат в 2,3 раза больше энергии, чем углеводы и белки. Переваримость жиров животными высокая и зависит от их структуры, жирнокислотного состава и ряда других факторов.
Наряду с высокой энергетической ценностью жиры являются источниками жирных кислот. Из природных липидов выделено около 200 различных жирных кислот.
Жирные кислоты — это строительные блоки в структуре нейтральных жиров и масел, фосфоглицеридов, гликолипидов, эфиров холестерина и некоторых восков. В углеродной цепи жирных кислот все связи могут быть насыщенными или ненасыщенными. В связи с этим, все жирные кислоты, входящие в состав липидов, делятся на насыщенные (пальмитиновая, стеариновая, арахиновая) и ненасыщенные (олеиновая, линолевая, линоленовая и арахидоновая).
По значению в питании животных ненасыщенные жирные кислоты делятся на заменимые и незаменимые. Незаменимые — это полиненасыщенные жирные кислоты, необходимые для поддержания нормальной физиологической деятельности животного. Животные не могут синтезировать ненасыщенные незаменимые жирные кислоты, поэтому они должны получать их с кормами.
К незаменимым жирным кислотам относят линолевую ( вита мин Р ), линоленовую и арахидоновую кислоты. Однако установлено, что в организме животных из линолевой кислоты могут синтези роваться линоленовая и арахидоновая кислоты.
Линолевая кислота обладает исключительно высокой биологической активностью в организме. Объясняется это тем, что она является предшественником простагландинов — веществ с широ ким спектром физиологического действия.
Недостаток незаменимых жирных кислот приводит к наруше нию обменных процессов, поражению кожного покрова, пони жению естественной резистентности организма к инфекционным болезням, снижению продуктивности и воспроизводительной функции животных и жизнеспособности потомства, к повыше нию затрат корма на единицу продукции.
При недостатке в кормах липидов, главным образом лецитина, особенно с одновременным недостатком холина или метионина, у животных нарушаются функции печени и почек, развивается жировая инфильтрация печени. При этом одним из основных признаков расстройства обмена липидов в организме является кетоз — накопление в крови, высокое выделение в моче и появление в молоке кетоновых тел. Кетоз часто сопровожлается сдвигом рН в кислую сторону и образованием бета-оксимасляной, ацетоуксусной кислот и ацетона.
