
Некоторые исследователи связывают содержание глюкозы в крови с общей концентрацией ЛЖК в рубцовой жидкости [275, с. 123-125]. Так, с повышением уровня ЛЖК в рубцовой жидкости на 11,5 % у аналогов II опытной группы произошло увеличение концентрации глюкозы до 4,24 ммоль/л. Использование рационов, содержащих на 15% больше ОЭ с КОЭ 11,7 МДж по отношению к контролю, отразилось менее интенсивным накоплением как ЛЖК – на 6,56 %, так и глюкозы в крови до 3,4 ммоль/л.
Статистически достоверных различий по этому показателю между группами не выявлено.
Углеводный обмен тесно связан с жировым. В этом взаимодействии происходит окисление и восполняются энергетические затраты в процессе жизнедеятельности организма [24].
В ходе сравнительного анализа содержания холестерина установлена положительная тенденция к его увеличению в зависимости от энергообеспеченности рациона. Повышение уровня энергии в рационе II опытной группы способствовало большему накоплению холестерина в крови бычков на 1,37 ммоль/л. Наиболее высокое содержание холестерина установлено в крови аналогов из III опытной группы – 3,47 ммоль/л, что выше I контрольной группы на 2,04 (P<0,05) ммоль/л.
Показатели крови, характеризующие состояние минерального обмена, наиболее полно отражают уровень метаболизма в организме [155; 157].
В организме кальций тесно связан с фосфором, который играет важную роль в нормализации белкового, жирового и углеводного обмена [102; 260].
Концентрация неорганического фосфора в сыворотке крови контрольных бычков превышала опытных. Превосходство над контрольными сверстниками по этому показателю составило 10,98 и 6,36 %, соответственно, во II и III опытных группах.
Уровень магния в сыворотке крови аналогов III опытной группы уступал контрольному молодняку на 5,56 %. Достоверных различий при этом не установлено.
Повышение содержания энергии в рационе до 10 % к контролю при КОЭ 11,4 МДж привело к снижению концентрации железа в плазме крови на 6,84 % и, напротив, с повышением до 15 % энергии рациона отмечено увеличение железа в плазме на 6,06 %, что связано с отложением в организме экзогенного железа в виде трехвалентного оксида железа [84; 146, с. 75]. Указанные различия не являлись достоверными.
Учитывая межгрупповые различия в контролируемых гематологических показателях необходимо отметить, что все они находились в пределах физиологических норм и характеризуют нормальное течение
обмена веществ.
Таким образом, использование рационов с повышением энергетической питательности на 10 % от норм ВАСХНИЛ (1985) при КОЭ 11,4 МДж усилило интенсивность обменных процессов, что привело к повышению концентрации эритроцитов в крови на 2,67 %, гемоглобина – на 7,3 г/л, глюкозы – на 9,52 %.
Скармливание рациона с увеличением энергонасыщенности на 15 % при КОЭ 11,7 МДж привело к снижению уровня общего белка на 5,6 % (P<0,05), фосфора – на 6,4 %, магния – на 5,6 %.
3.3.7 Динамика живой массы
Литературные данные показывают, что полноценное кормление животных, то есть кормление рационами, обеспечивающими организм всеми питательными веществами в оптимальных количествах, способствует максимальному росту, развитию животного и повышению его продуктивности [2; 222, с. 60].
В результате проведенного нами опыта было установлено, что разный уровень и концентрация ОЭ в рационах оказал положительное влияние на динамику живой массы бычков (таблица 21).
Таблица 21 – Живая масса и продуктивность, X ± Sx
| Показатель | Группа | ||
|---|---|---|---|
| I | II | III | |
| Живая масса в начале опыта, кг | 294,9±5,29 | 306,3±6,12 | 298,7±7,42 |
| Живая масса в конце опыта, кг | 486,3±5,19 | 504,8±5,34* | 496,7±6,32 |
| Валовой прирост, кг | 191,4±2,56 | 198,5±1,82* | 198,0±2,02 |
| Среднесуточный прирост, г | 1063±14,25 | 1103±10,11* | 1100±12,10 |
| ± к контрольной группе, г | - | 40 | 37 |
| Затраты ОЭ на 1 МДж в приро- сте живой массы, МДж | 4,95 | 4,70 | 4,96 |
Важным показателем роста и развития молодняка является живая масса. Она позволяет прижизненно оценить мясную продуктивность животного и в определенной степени выявить эффективность того или иного рациона кормления [242].
При снятии с опыта живая масса молодняка II и III опытных групп была выше I контрольной на 3,8 (P<0,05) и 2,14 %, соответственно.
За период с 13 до 18 месяцев животные I контрольной группы увеличили свою массу на 191,4 кг, тогда как их аналоги из II опытной группы – на 3,71 % (P<0,01), III опытной – на 3,45 % больше.
Продуктивное действие испытуемых рационов было неодинаковым
и об этом свидетельствуют показатели среднесуточных приростов живой массы. Бычки II опытной группы по энергии роста превосходили сверстников из I контрольной – на 3,76 % (P<0,05).
Повышение уровня энергии в рационе до 15 % при КОЭ 11,7 МДж показало приросты такого же уровня, как и у аналогов II опытной группы.
Аналогичная динамика отмечена в ряде ранее проведенных исследований [166; 168; 271].
Скармливание рационов с повышенным уровнем энергии до 10 % к I контрольной группе оказало положительное влияние на использование организмом животного ОЭ для синтеза компонентов прироста. Так, процесс синтеза 1 МДж энергии, заключенной в приросте, обеспечивался 4,70 МДж ОЭ корма, что является наилучшим опытным результатом и был выше I контрольной группы на 5,05 %. Бычки III опытной группы использовали 4,96 МДж ОЭ для образования 1 МДж энергии прироста, что не отличается от контрольного показателя.
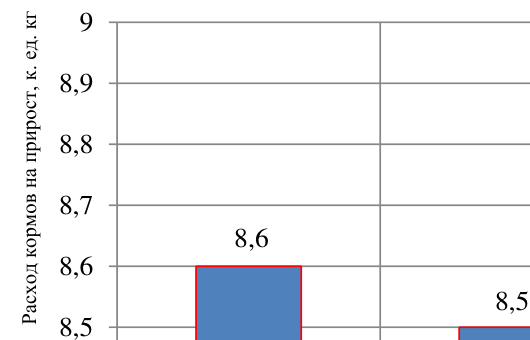
При интенсивном производстве говядины 55-65 % всех затрат в структуре ее себестоимости занимают корма. Следовательно, рентабельность промышленного производства говядины обусловлена главным образом расходом кормов на единицу прироста [222, c. 60].
Исходя из графических данных рисунка 4, наиболее эффективно использовали корма рациона животные II опытной группы и были выше I контрольной на 1,16 %.
9
8,9
8,8
8,7
8,6
8,6
8,5
8,5
Расход кормов на прирост, к. ед. кг
| 8,6 | |||||||
| 8,5 | |||||||
| Рисунок 4 – | Расход кормов | на | продукцию | ||||
| кормов на прирост живой массы тела у молодняка III опыт- | |||||||
| был самым высоким и | превосходил контрольных аналогов | ||||||
