
канюль на рубце [179] и тонком кишечнике (на двенадцатиперстной (duodenum) и подвздошной (ileum) кишках), а также катетеризации воротной и других вен [208], артерий и вен молочной железы и проведение всех выше перечисленных операций на одном животном [129, 176].
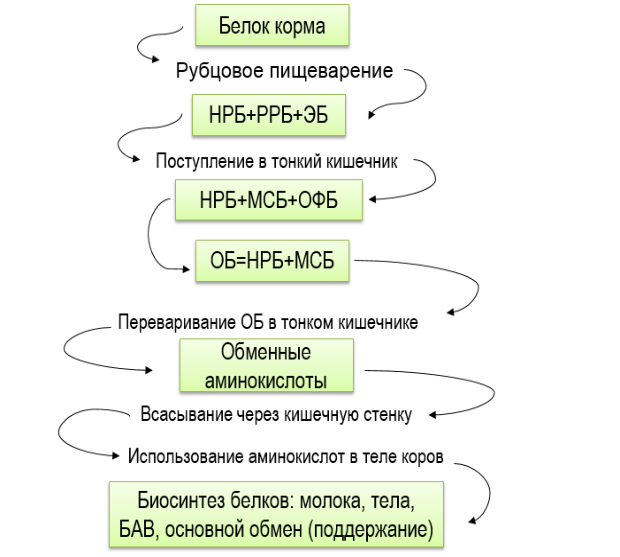
По данным академика В. Г. Рядчикова [92] определение количества обменного белка устанавливается: а) подсчетом конверсии МСБ в обменный (ОБ), который составляет 64 % [(80•80)/100] из расчета коэффициента переваримости микробного белка – 80 %; б) доли вклада НРБ в ОБ, который будет зависит от вида корма; в) конверсии эндогенного сырого белка (ЭСБ) в ОБ, который будет равен 40 %, исходя из переваримости истинной доли эндогенного белка в эндогенном сыром белке переходящем в дуоденум – 50 % и его переваримости в тонком кишечнике – 80 % [(80•80)/100]. Потребность в обменном белке (протеине) рассчитывается факториальным методом включая потребность на поддержание и продукцию. Потребность для поддержания состоит из эндогенного азота мочи, азота поверхностных белков (перхоти, волос, секреций кожи) эндогенного белка переднего отдела пищеварительного тракта и обменного фекального азота.
Потребность для продукции включает протеин, необходимый для оплодотворения, роста и лактации [186].
Непосредственными предшественниками биосинтеза белка являются свободные аминокислоты, поступающие из артерий в секреторные клетки молочной железы. После переваривания и всасывания через кишечную стенку аминокислоты попадают в портальную кровеносную систему, охватывающую весь желудочно-кишечный тракт, далее по воротной вене в печень, затем к тканям и органам в т.ч. к молочной железе. Как показывают исследования, количество и профиль аминокислот, адсорбированных в кишечнике, заметно отличается от таковых в потоке аминокислот, освобожденных в воротной вене [155]. Значительная часть аминокислот (более 30 %) при всасывании метаболизируется в процессе белкового и энергетического обмена тканями желудочно-кишечного тракта [162, 204]. По данным ВНИИФБиП в тонком кишечнике коров метаболизируется 9,2 % всосавшихся лизина, 3,6 % метионина и 8,4 % гистидина [106]. Повидимому, реальное количество аминокислот в снабжении животных можно измерить в воротной вене, однако технология этого процесса весьма сложная, кроме того, количество и профиль аминокислот зависит не только от их поступления из кишечника, но и от наличия эндогенного постоянно существующего пула свободных аминокислот, обусловленного обновлением белков организма животных в процессе обмена веществ. Поэтому использование потока аминокислот воротной вены для расчетов истинного их количества нуждается в дальнейшем совершенствовании методики.
Нормы незаменимых аминокислот достаточно хорошо разработаны для свиней и птиц, они прочно вошли в практику, что способствовало существенному повышению производства продукции, снижению затрат белка за счет правильного балансирования рационов кормовыми компонентами и применения препаратов синтетических аминокислот, и, как следствие, росту экономической эффективности этих отраслей [89]. У жвачных в отличии от свиней и птиц определить обеспеченность незаменимыми аминокислотами (НАК) по их содержанию в корме невозможно, так как пищеварение у них происходит в сложном четырехкамерном желудке, которое существенно отличается от
пищеварения у животных с простым однокамерным желудком. У жвачных интенсивная переработка корма происходит в рубце под воздействием микроорганизмов. В результате микробной ферментации 60 % белка и более распадается до аминокислот и аммиака, которые используются на синтез микробного белка, существенно отличающегося по аминокислотному составу от такового съеденного корма [139, 144]. Небольшая часть кормового белка 30–40 % избегает микробной деградации и поступает в сычуг и тонкий кишечник, где переваривается по такому же принципу, как у моногастричных животных. Таким образом, если у моногастричных аминокислотный состав пищевой массы, поступающей в тонкий кишечник, отражает состав съеденного корма, то у жвачных пострубцовый химус существенно отличается от состава корма. Как показывают исследования, количество и профиль аминокислот, адсорбированных в кишечнике, заметно отличается от таковых в потоке аминокислот, освобожденных в воротной вене [155]. Значительная часть аминокислот (более 30 %) при всасывании метаболизируется в процессе белкового и энергетического обмена тканями желудочно-кишечного тракта [161, 193, 204]. По данным ВНИИФБиП в тонком кишечнике коров метаболизируется 9,2 % всосавшихся лизина, 3,6 % метионина и 8,4 % гистидина [30]. По-видимому, реальное количество аминокислот в снабжении животных можно измерить в воротной вене, однако технология этого процесса весьма сложная, кроме того, количество и профиль аминокислот зависит не только от их поступления из кишечника, но и от наличия эндогенного постоянно существующего пула свободных аминокислот, обусловленного обновлением белков организма животных в процессе обмена веществ.
На сегодняшний день накоплено достаточно прямых доказательств того, что первыми лимитирующими незаменимыми аминокислотами в обменном белке кукурузно-соевых рационов жвачных являются лизин и метионин. Потребность в обменных лизине (ОЛ) и метионине (ОМ), на биосинтез белка молока и поддержание у лактирующих коров, составляет 7,2 и 2,4 % от обменного белка [186]. В других работах, потребность в ОЛ была от 6,8 до 7,5 %, в ОМ от 2,3 до 2,5 % [112]. Обеспечение в столь высокой потребности в лизине и метионине, несмотря на большой
