
альбумина в результате усиленного расходования его на биосинтетические процессы. Поэтому некоторое снижение общего белка во время стельности не является патологией.
На сегодняшний день не существует детальных норм состава крови для молочного скота в переходный период, на основании которых можно было бы судить о соответствии состава корма потребностям организма, состоянии обмена веществ и здоровья животных. Однако отклонения в биохимических показателях крови более чем на 20 % от диапазона указанной нормы, свидетельствует о развитие патологических процессов и требуют внимательного обследования со стороны ветеринарных врачей.
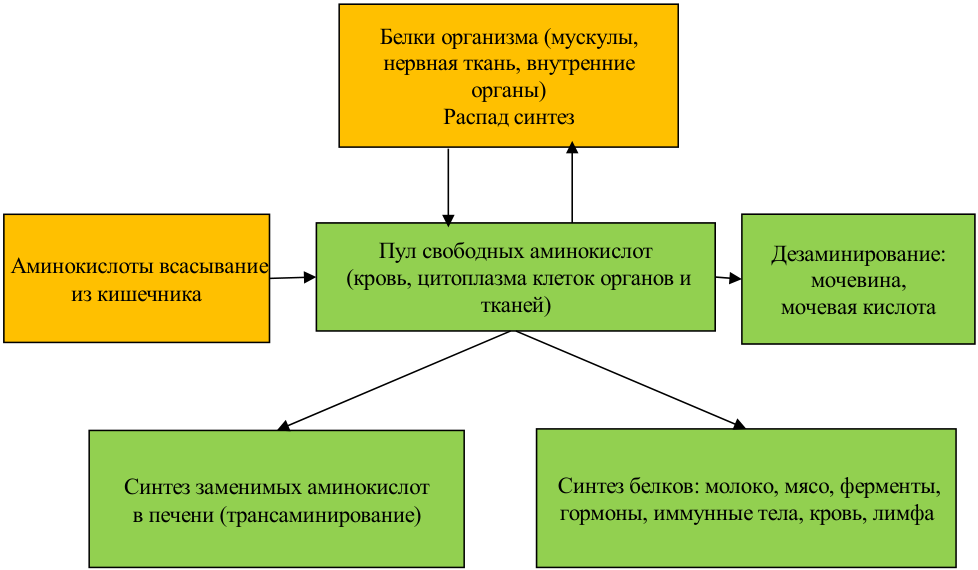
Состояние белкового обмена недостаточно оценивать по уровню общего белка и глобулинов в крови коров. Адекватная оценка возможна после детального анализа пула свободных аминокислот крови, фонд которых сформирован из аминокислот, поступивших в кровь из желудочно-кишечного тракта, как продуктов переваривания белков, и аминокислот, освобожденных из белка тела в процессе обновления. На рисунке 2 изображена условная схема обмена белка и аминокислот в организме коров.
Белки организма (мускулы,
нервная ткань, внутренние
органы)
Распад синтез
Пул свободных аминокислот Дезаминирование:
Аминокислоты всасывание
(кровь, цитоплазма клеток органов и мочевина,
из кишечника
тканей) мочевая кислота
Синтез заменимых аминокислот Синтез белков: молоко, мясо, ферменты,
в печени (трансаминирование) гормоны, иммунные тела, кровь, лимфа
Рисунок 2 – Условная схема обмена белка (аминокислот) в организме коров
Пул свободных аминокислот является определенным субстратом, концентрация которого, влияет на процессы синтеза белков и других биологически важных азотсодержащих веществ в организме животного.
У коров, в связи с беременностью и лактацией, физиологические параметры пула свободных аминокислот изменяются. Эти сведения подтверждают многие авторы [12, 25, 30, 39, 53, 55, 93, 106, 111, 146, 163, 173, 195, 225]. Так, уровень изолейцина, лейцина, лизина и треонина в первые четыре месяца стельности удерживается на одном уровне, а во вторую половину стельности и вплоть до отела происходит понижение их концентрации. Последнее связано с использованием аминокислот на синтез белка для растущего плода, формирования костной системы, выработки гемоглобина, поддержания ионного баланса и т.д. Фенилаланин и валин уменьшаются от трех месяцев к отелу, но в самом конце стельности их величина несколько повышается.
За месяц до отела количество аминокислот, в сравнении с первой половиной стельности резко снижается [6]. При этом уровень содержания свободных аминокислот в крови плода постоянно выше, чем у матери и они – материнского происхождения и поток аминокислот от матери к плоду значительно интенсивнее, чем в обратном направлении [25, 46, 159].
Предродовой период у коров является критическим в обмене аминокислот, что объясняется усиленным ростом плода, подготовкой организма коровы к лактации и, по-видимому, ослаблением микробиального синтеза белка в преджелудках. Наибольшее снижение содержания свободных аминокислот, как в абсолютном выражении, так и по их количеству установлено за 10 дн до отела и главным образом, по незаменимым аминокислотам, что указывает на уменьшение их резерва в крови. У коров за несколько дней до отела начинается биосинтез составных частей молока [17].
Интересно, что за четыре дня до отела и в течение трех дней после него, содержание многих аминокислот снижается, а затем – повышается. аланина и Одновременно сумма глутамина поднимается до 200 % в день отела, а к третьему дню после отела
снижается до величины более низкой, чем за три дня до отела [218].
С нулевого по 21-й день после отела показатели свободных аминокислот в сыворотки крови здоровых коров повышаются, что связано с интенсивностью обмена веществ, направленного на Это за счет всех молокоотдачу. увеличение происходит аминокислот, в особенности лизина, глицина, лейцинов, аланина, валина и метионина. Среди заменимых аминокислот, важно выделить глютаминовую кислоту, так как на ее долю в казеине приходится более 20 % от всех аминокислотных. Так же в тканях молочной железы, глютамат и пролин формируют глутаматный пул, повышая белковый синтез в ее клетках [181].
Для формирования белков молозива и молока расходуются не только свободные аминокислоты крови, но и аминокислоты, освобождающиеся при распаде клеточных и межклеточных белков. Эти источники свободных аминокислот составляют два отдельных пула и обозначаются Kdl – для цитоплазматической деградации и Kd2 – для лизосомальной деградации. Источник Kd2 служит резервом при ограничении поступления аминокислот [123, 181]. Артериовенозная разница аминокислот отлична по количеству их всасывания из крови в молочную железу и при синтезе молока. Аргинин, валин, изолейцин, лизин поглощаются из крови в большем количестве, чем выделяются с молоком. Заменимые же аминокислоты в меньшем используются количестве, чем для синтеза белков молока [36, 110].
В периоде после отела и разгар лактации, многие авторы [167, 194, 195, 224] отмечают недостаточность лимитирующих аминокислот в организме заключая, что для повышения молочной продуктивности у животных этот дефицит должен восполняться за счет состава рациона и факторов, стимулирующих синтез белка в преджелудках и ресинтез АТФ в тканях, в оптимальных соотношениях. Лизин, метионин, треонин, тирозин, валин, фенилаланин, лейцин и гистидин являются преимущественно лимитирующими, так как в наибольшей части всасываются и расходуются на синтез белков молока у коров [2, 42, 84, 89, 93, 111, 112].
