
Следует обратить внимание, что 0 <b 1 < 2, поскольку каждый потомок получает от отца только 0,5 EBV . Для среднего значения большой группы потомства случайные эффекты нивелируются, и поэтому среднее значение будет равно 0,5 EBV быка. Ожидаемые величины признаков будущего потомства равны
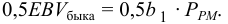
0,5 EBV быка = 0,5 b 1 · PPM .
Таким образом, выражение 0,5 b 1 можно обозначить, как «наследуемость по качеству потомства». Данный тест определяет, какая часть различий в наблюдаемых средних значениях по потомству имеется благодаря быку и может прогнозироваться у будущего потомства. Точность теста по качеству потомства также равняется квадратному корню из «наследуемости» – наследуемости по качеству потомства ( pt ): [ h2 pt= n/(n + a)]. Сле- довательно, точность теста по качеству потомства равна n + n a . Она позволяет быстро определить точность для любого признака с наследуемостью h2 (где а = (4– h2 ) / h2 ).
При индивидуальной оценке достигнуть идеальной точности (0,99) практически невозможно, если только наследуемость не будет близка к единице. Очень точные значения EBV возможны для быков, интенсивно используемых в популяции.
Селекционной практикой принято, что если нет информации о животном, то EBV принимают за 0. Отсюда нижний предел колебания EBV равен 0. При наличии достаточного количества информации EBV будет такой же, как реальная племенная ценность ( TBV ), и колебание EBV будет равно генетической вариантности (равно вариантности TBV ).
В целом вариантность ( Var ) EBV рассчитывается по формуле
Var (EBV) = r/A2 VA ,
где r/A – точность EBV ; VA – генетическая вариантность.
Отсюда вариантность EBV равна точности в квадрате, умноженной на вариантность реальных племенных ценностей (дополнительную генетическую вариантность), т. е. колебание предполагаемых племенных ценностей тем выше, чем выше точность EBV .
По мнению M. Majer [121], в селекционной работе существенное значение имеет определение диапазона колебаний вариантности погрешностей прогноза EBV . ( EBV – это оценка (или прогнозирование) ценностей потомства.) Погрешность прогноза помогает отвечать на вопросы
о возможных изменениях EBV по мере получения дополнительной информации (т. е. большего количества потомков).
Вариантность погрешности прогноза ( PEV ) вычисляется следующим образом:
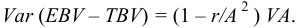
Var ( EBV – TBV ) = (1 – r/A 2 ) VA .
Стандартная погрешность прогноза равна
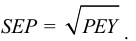
SEP = PEY .
Для появления различий у потомства одних родителей есть 3 причины: – систематическое влияние среды: потомок мужского пола будет тяжелее потомка женского пола; потомок, выращиваемый в лучших условиях, будет иметь лучшие показатели признаков;
– влияние случайных факторов среды: болезнь отдельных особей, стрессы и т. д.;
– генетические различия между потомками одних родителей, поскольку братья и сестры не идентичны генетически. Братья и сестры не одинаковы благодаря внутрисемейной генетической изменчивости, равной 50 % общей генетической изменчивости (в популяциях, где не проводится селекция), так как вариантность племенной ценности равна
- Var ( BV ) = Var (½ BV быка + ½ BV коровы + случайный (внутрисемейный) компонент = ¼ Var ( BV быков + ¼ BVr ( BZ коров) + ½ Var ( BV ) .
Вариантность племенных ценностей равна генетической вариантности, и в популяциях, где не осуществляется селекция, вариантность племенных ценностей коров, быков и их потомства остается одинаковой.
- Таким образом, прогноз потенциала потомства проводится
на основании:
-
индивидуальных EBV родителей;
-
средней EBV группы родителей.
Средняя EBV отобранной группы родителей прогнозируется как селекционный дифференциал ( Sd ), с использованием селекционной интенсивности, которая зависит от выбранной пропорции, и диапазона EBV .
Селекционный дифференциал родителей вычисляется по формуле
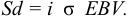
Sd = i σ EBV.
Потомство наследует среднюю EBV своих родителей, и отсюда группа потомков наследует среднюю EBV группы отобранных родителей. Это ожидаемые генетические достоинства потомства, его реакция на селекцию R .
Реакция на селекцию
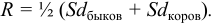
R = ½ ( Sd быков + Sd коров) .
В случае если селекционные дифференциалы особей мужского и женского пола будут одинаковыми, то R = Sd . Важно, что селекционные дифференциалы EBV равны реакции, в то время как селекционные дифференциалы, основанные на фенотипических проявлениях, необходимо умножить на наследуемость.
Поэтому селекционный дифференциал (и реакцию) можно записать в следующем виде:
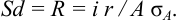
Sd = R = i r / A σ A .
Таким образом, общая формула прогнозирования реакции на селекцию следующая:
Реакция = i r/A σ A Интенсивность × точность × диапазон
Пример
Предположим, что отобрали 50 % животных → i = 0,79, стандартное генетическое отклонение σ A = 19.
| Селекция | Точность (r/A) | Ожидаемая реакция (R) | Реализованная реакция |
|---|---|---|---|
| по PA | 0,45 | +6,8 | +5 |
| EBV | 0,63 | +9,5 | +11 |
| BV | 1,00 | +15 | +17 |
В практической работе интенсивность селекции и точность оценки не одинаковы для особей мужского и женского пола. Как правило, оба эти значения выше для особей мужского пола.
Если по каждому животному имеется большой объем информации, возрастает точность ( r/ A), следовательно, увеличивается и реакция, т. е. реакция на селекцию напрямую связана с точностью EBV . В этой связи имеет смысл увеличить точность, добавив информацию о родственниках. Это особенно важно, если отбор осуществляется по признакам с низкой наследуемостью, поскольку отбор только на основании фенотипа в данном случае не будет достаточно точным.
2.4.1. Прогнозирование племенной ценности производителей
Выявлять племенную ценность производителей в молочном скотоводстве возможно в их зрелом возрасте, что приводит к увеличению интервала между генерациями, и, следовательно, замедлению темпов селекции. Поэтому ранняя оценка быков по качеству потомства сокращает сроки выявления их наследственных качеств. Раннее введение быков в воспроизводство и прогнозирование их племенной ценности за укороченную или
