
( Membrana granulosa ), а наружная – фолликулярной оболочкой ( Theca folliculi ). У половозрелой тёлки или нестельной коровы в течение каждого полового цикла в яичнике развивается граафов пузырёк, где и находится овоцит. Фолликулярные клетки зернистой оболочки, окружающие овоцит, располагаются непосредственно вокруг него радиально и образуют лучистый венец, или радиальную корону ( Corona radiata ). Граафовы пузырьки представляют собой фолликулы размером 1…2 см. Они выступают на поверхности яичника коровы и их можно выявить при ректальном исследовании и определить степень созревания.
Рост овоцита идёт неравномерно. В период малого роста интенсивно выражены синтетические процессы. Малый рост происходит на стадии профазы мейоза. Отличительной его чертой является рост только за счёт собственного синтеза, что приводит к увеличению количества РНК, белков, рибосом, митохондрий и многих ферментов. В то же время, несмотря на интенсивные синтетические процессы, ядерно-цитоплазматические соотношения, типичные для соматических клеток, сохраняются.
После наступления половой зрелости или половой охоты ооцит первого порядка вступает в период большого роста. Этот период отличается особо высокой интенсификацией процессов роста овоплазмы и изменением ядерно-цитоплазменного соотношения. Овоплазма увеличивается на основе экстрагонадного типа питания, которое происходит с помощью фолликулярных клеток, окружающих овоцит. Основная функция фолликулярных клеток сводится к обеспечению притока в овоцит питательных веществ, синтез которых осуществляется экстрагонадно, т. е. вне яичника, например, в печени. Из печени питательные вещества поступают в кровь, а затем через фолликулярный эпителий в овоцит. Однако перед этим они должны пройти через барьер, образуемый фолликулярными клетками.
Овоцит, достигший в период роста больших размеров, не обладает структурой и функцией яйцеклетки, способной к оплодотворению. Для того чтобы стать такой яйцеклеткой, он должен пройти период созревания.
В период созревания овоцит первого порядка проходит два деления мейоза, после чего завершается преобразование овоцитов в зрелые яйцеклетки. Завершение овогенеза осуществляются под действием гонадотропных гормонов передней доли гипофиза. Только после такого воздействия в фолликуле начинается созревание овоцитов.
К моменту созревания фолликул занимает более периферийное положение и выступает над поверхностью яичника. Непосредственно перед течкой граафов пузырёк очень быстро увеличивается в размере в результате повышенной секреции жидкости. Одновременно с этим начинает ослабляться связь между клетками фолликулярного эпителия в яйценосном бугорке ( Cumulus oophorus ). Это приводит к тому, что, с одной стороны, соединение Cumulus oophorus с заключенным в нём овоцитом становится непрочным, с другой стороны, сама стенка фолликула разрыхляется и лопается при овуляции. В то же время клетки, образуют лучистый венец ( Corona radiata ). Такая радиальная группировка клеток фолликулярного эпителия вокруг ооцита сохраняется ещё некоторое время после того, как овоцит покидает яичник и достигает яйцевода.
Одновременно с вышеописанными изменениями продолжаются процессы на одном ограниченном участке стенки фолликула, которые приводят к тому, что фолликулярный пузырёк открывается на свободной поверхности яичника. Фолликулярная жидкость вытекает через отверстие, а овоцит с лучистым венцом выходит наружу и улавливается фимбриями яйцевода. В результате этого процесса, который называют овуляцией, овоцит перемещается из яичника в яйцевод, где происходит оплодотворение.
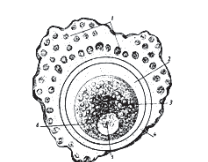
1 – клетки лучистого венца; 2 – перивителлиновое пространство, 3 – желточные зёрна, 4 – прозрачная оболочка, 5 – ядро, 6 – желточная оболочка
Рисунок 67 – Схема строения яйцеклетки.
Механизм овуляции очень сложный, и считать его окончательно выясненным нельзя. Разрыв фолликулярного пузырька объясняли многи-
ми факторами, в том числе и действием протеолитических ферментов в фолликулярной жидкости и повышенной секрецией фолликула, и сокращением контрактильных элементов в стенке фолликула.
Одновременно с созреванием овоцита происходит и его окончательное развитие . Первичный овоцит (овоцит первого порядка) проделывает редукционное деление с уменьшением вдвое числа хромосом в образовавшихся дочерних клетках. Одна из них очень мала и из-за своего эксцентричного положения называется первым полярным тельцем. Вторичный овоцит (овоцит второго порядка) переходит непосредственно к новому делению, которое в момент овуляции достигает, как правило, стадии метафазы. Это второе деление созревания завершается образованием второго полярного тельца только в связи с оплодотворением в яйцеводе. Оба полярных тельца дегенерируют и исчезают.
После выпадения овоцита и вытекания фолликулярной жидкости граафов пузырёк спадает. Его диаметр уменьшается приблизительно до половины зрелого фолликула. Это приводит к образованию на стенке фолликула складок, которые проникают внутрь и уменьшают полость фолликула. Она также наполняется небольшим количеством крови и жидкости, выступающей из стенки фолликула. Жидкость и кровь коагулируют, образуя пробку, заполняющую бывшую полость фолликула. Складки, проникающие в пробку, состоят из выростов Theca folliculi , окруженных зернистыми клетками. Эти последние быстро увеличиваются в размерах, но количество их не возрастает. В их цитоплазме откладываются липоиды и пигменты, и она принимает жёлтую окраску. Таким образом, прежняя полость фолликула заполняется зернистыми клетками (которые теперь называются лютеиновыми клетками) и выростами Theca interna , где имеются мелкие кровеносные сосуды.
Возникшая структура называется жёлтым телом ( Corpus luteum ) и является местом образования гормона прогестерона.
Жёлтое тело в течение нескольких дней заполняет прежнюю полость фолликула. Оно продолжает расти и довольно сильно выступает над поверхностью яичника. Если беременность не наступила, жёлтое тело ( Corpus luteum periodicum ) вскоре после достижения им максимальной
