
Искусственное получение однояйцевых близнецов
Решение проблемы копирования генотипов высокопродуктивных животных обусловлен прежде всего разработкой новых способов получения генетически идентичных животных. Крупный рогатый скот характеризуется малой частотой двойнёвости, ещё реже встречаются однояйцевые двойни. Низкие показатели частоты двойнёвости и её наследуемости не позволяют рассчитывать на высокую эффективность селекции.
Разделение ранних эмбрионов на два или более бластомеров, способных развиваться в процессе всего онтогенеза, с последующей пересадкой их реципиентам повышает выход телят минимум в 2 раза.
Всех близнецов можно разделить на два типа: двуяйцевые (дизиготные) и однояйцевые (монозиготные). Двуяйцевые близнецы возникают в результате оплодотворения двух яйцеклеток разными спермиями. Однояйцевые – путём разделения зиготы таким образом, что обе половины отделяются друг от друга и развиваются в отдельные эмбрионы. Разделение эмбриона на две части происходит на 2- или 8-клеточных стадиях эмбрионального развития. Другим механизмом возникновения монозиготных двоен является расщепление эмбриобласта внутри бластоцисты.
С генетической точки зрения возникновение монозиготных близнецов связано с копированием генотипов. Принципиальный механизм спонтанного возникновения монозиготных двоен может быть использован для искусственного получения однояйцевых двоен, представляющих собой генетические копии.
Первые монозиготные близнецы крупного рогатого скота были получены в 1981 году С. Вилладсеном с сотрудниками.
Для получения монозиготных двоен 8…10-суточные эмбрионы, находящиеся на стадии бластоцисты, разделяют тонким металлическим ножом точно посредине трофобласта и эмбриобласта (рисунок 79).
На деление одной бластоцисты затрачивается всего 1 минута. После 2…4-часового культивирования при 37 °С половинки эмбрионов по-
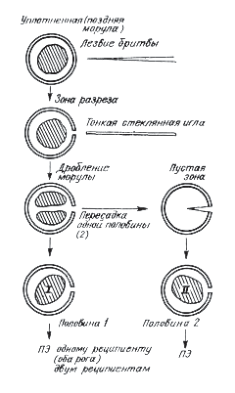
мещают в пайетты и трансцервикально (на 8-е сутки) трансплантируют гормонально подготовленным реципиентам. Исследователи подчеркивают, что в практических условиях наиболее пригодными для трансплантации являются половинки эмбрионов 8-суточного возраста.
Основным методом хранения половинок эмбрионов является криоконсервация. Для глубокого замораживания половинок эмбрионов считает целесообразным использовать 8-суточные эмбрионы, находящиеся на стадии бластоцисты, но более эффективным считается деление эмбрионов после процесса замораживания.
Рисунок 79 – Схема деления эмбрионов крупного рогатого скота, по Б. П. Завертяеву.
Окончательная разработка данного биотехнического метода позволит использовать моно-
зиготных двоен как в исследовательских целях, так и в практических программах по воспроизводству и селекции крупного рогатого скота.
Регулирование пола
Получение животных определенного пола имеет важное практическое значение, особенно для молочного скотоводства, где главный хозяйственно полезный признак (молочная продуктивность) относится к признакам, ограниченным полом, поэтому возникает важная задача – регулирование соотношения полов.
Коровы имеют половые хромосомы XX , быки XY , остальные хромосомы (аутосомы) у животных разных полов одинаковы. В популяциях животных поддерживается соотношение полов 50 % : 50 %.
Парный набор гомологичных половых хромосом XX в кариотипе млекопитающих определяет развитие самки, а гетерогенных XY -хромосом – самца. Спермии с Y -хромосомой имеют меньшую массу и величину. У млекопитающих размеры Х -хромосомы обычно выше по сравнению
с размерами Y -хромосомы. Так, средний размер Х -хромосомы крупного рогатого скота составляет 6,17 мкм, а Y -хромосомы – 2,22 мкм. На разнице массы спермиев с Х - и Y - хромосомами основан метод разделения спермиев путём центрифугирования . В большинстве случаев спермии с Y -хромосомой легче спермиев с Х -хромосомой всего на 2…4 %, поэтому эффективность такого метода разделения спермиев низкая, а сам метод не нашёл распространения.
Электрофоретический метод разделения спермиев основан на том, что в электрическом поле мужские гаметы с Х - и Y -хромосомами несут разные заряды, поэтому с помощью электрофореза можно разделить спермии на две генетически разные части, обусловливающие детерминацию полов. Было установлено, что спермии с Х -хромосомой в процессе электрофореза направляются к аноду, а спермин с Y -хромосомой – к катоду. В. Н. Шредер (1965) отмечала, что после искусственного осеменения самок спермиями, находившимися у анода, в потомстве рождаются преимущественно самки, а при осеменении спермиями, находившимися у катода, – самцы. Н. Hafs, L. Boyd (1974) электрофоретическим методом смогли разделить сперму быков на отдельные фракции. При искусственном осеменении коров спермиями из фракции спермы, находившейся у катода, было получено в потомстве 44 % бычков. Разница между потомками разных полов, полученных от осеменения коров разными фракциями спермы, оказалась статистически недостоверной.
В основе метода фильтрации лежит разная подвижность спермиев с разными половыми хромосомами: более лёгкие спермии с Y-хромосомой обладают большей подвижностью и быстрее проходят через вязкий слой альбумина. Проверка этого метода не дала положительных результатов. Из полученных 158 телят от искусственного осеменения коров спермиями с Y-хромосомами доля бычков в потомстве составила 58,6 %.
В последнее время для разделения спермиев используют флюоресцентную окраску Y-хромосом, а также метод импульсной цитофотометрии для определения содержания в Х - и Y -спермиях хроматина.
Иммунологический метод разработан, когда был обнаружен Н - Y -антиген, генетически детерминирующий Y-хромосому. Этот антиген был
