
ки. У коров, как правило, овулируют 1…2 фолликула. Овуляция происходит через 10…15 часов после окончания охоты, чаще рано утром.
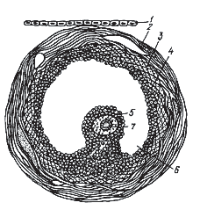
На разрезе яичника видны две зоны: корковая – фолликулярная и мозговая – сосудистая. Корковая зона содержит фолликулы и жёлтые тела. В фолликулах проходят стадию роста овоциты. Различают несколько стадий развития фолликулов. Вначале они мелкие и называются примордиальными (первичными) ( folliculi primarii ). Они располагаются в поверхностном слое коркового вещества (под белочной оболочкой). В центре примордиального фолликула находится, как правило, одна небольшая яйцеклетка (овоцит первого порядка), окружённая одним слоем уплощенных фолликулярных клеток. Однако встречаются фолликулы с несколькими яйцеклетками. Превращение примордиальных фолликулов во вторичные (растущие), а затем в зрелые происходит следующим образом. Первоначально примордиальные фолликулы и находящиеся в них яйцеклетки увеличиваются в размерах, уплощенные фолликулярные клетки превращаются в кубические, а затем в цилиндрические. Далее фолликулярные клетки, интенсивно размножаясь, несколькими слоями окружают яйцеклетку, образуется прозрачная оболочка ( Zona pellucida ). Такие фолликулы с несколькими слоями фолликулярных клеток вокруг яйцеклеток называются вторичными. В них ещё нет полости; они расположены в яичнике более глубоко, чем мелкие фолликулы. Развиваясь, вторичные фолликулы превращаются в граафовы пузырьки. По мере превращения фолликулярные клетки выделяют каплями жидкость, которая, сливаясь, сдавливает клетки фолликулярного эпителия, и между ними образуется небольшая полость. После этого фолликулы начинают расти быстрее, их полость растягивается фолликулярной жидкостью. Образовавшийся граафов фолликул состоит из соединительнотканной оболочки, так называемой тэки ( theca folliculi ), и многослойного эпителия – зернистого слоя. В соединительнотканной оболочке фолликула различимы два слоя: наружный (фиброзный), более плотный ( theca externa ), и внутренний ( theca interna ), или сосудистый, состоящий из рыхлой ткани и сосудов. Внутри граафова пузырька имеются обширная полость, заполненная фолликулярной жидкостью, и
яйценосный бугорок (утолщение зернистого слоя), расположенный на внутренней боковой стенке фолликула (рисунок 68). В этом яйценосном бугорке и находится яйцеклетка. Она окружена несколькими слоями фолликулярных (зернистых) клеток, которые формируют наружную оболочку яйцеклетки, называемую лучистым венцом или короной яйцеклетки ( corona radiata ).
Граафовы фолликулы – крупные образования, достигающие у коров диаметра 1…2 см. Они занимают всю толщу коркового вещества, выступая на поверхности яичника.
Фолликулов, следовательно, и яйцеклеток в яичнике очень много. У взрослой коровы в одном яичнике насчитывается 140 тыс. яйцеклеток. С возрастом число их резко уменьшается, и у коров старше 10 лет в яичниках имеется 2500 яйцеклеток. Следовательно, многие из них погибают вместе с фолликулами.
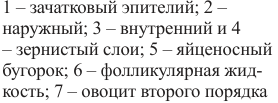
1 – зачатковый эпителий; 2 –
наружный; 3 – внутренний и 4
– зернистый слои; 5 – яйценосный
бугорок; 6 – фолликулярная жид-
кость; 7 – овоцит второго порядка
Рисунок 68 – Граафов фолликул (схема).
Вскрытие созревшего фолликула и выделение из него яйцеклетки называется овуляцией . У коров, как правило, овулируют 1…2 фолликула. Овуляция происходит через 10…15 часов после окончания охоты, чаще рано утром.
Незадолго до овуляции кровеносные сосуды яичника (особенно фолликула) расширяются, усиливается кровоток, заметно увеличивается количество фолликулярной жидкости. Фолликулы разрываются при незначительном давлении, равном 50…100 г (даже от прикосновения). После овуляции на месте лопнувшего фолликула образуется углубление с дряблыми краями. Опорожнённая фолликулярная полость фолликула
заполняется прежде всего кровью, а затем быстрорастущими клетками фолликулярного эпителия (зернистого слоя). Последние, приобретая многоугольную форму, превращаются в лютеиновые клетки, откладывающие жёлтый пигмент – лютеин. Возникшие лютеиновые клетки постепенно замещают кровяной сгусток и заполняют всю полость фолликула – формируется жёлтое тело (названное по его цвету). Жёлтое тело является временной железой внутренней секреции, оно выделяет гормон прогестерон, который вызывает подготовку слизистой оболочки матки к нидации зародыша и развитию плацент, способствует сохранению беременности и разрастанию железистой ткани молочной железы. Прогестерон препятствует росту новых зрелых фолликулов и их овуляции, а поэтому у беременных самок отсутствуют половые циклы.
Метэструс (metoestrum , послетечковая фаза ) – стадия ослабления признаков полового возбуждения и течки, характеризуется безразличным отношением к самцу; на месте овулировавшего фолликула развивается жёлтое тело. Животное успокаивается, аппетит постепенно восстанавливается, качество молока, состав крови, строение слизистой оболочки половых путей и другие сдвиги, возникшие в стадии возбуждения, выравниваются.
Диэструс ( diestrum , фаза жёлтого тела ) характеризуется завершением развития жёлтого тела, занимает около трёх дней (2…5-й день цикла). На 16…18-й день цикла, если рецепторы матки не определяют наличие эмбриона, они посылают гормональный сигнал (простагландины), вызывающий распад жёлтого тела. Распад жёлтого тела позволяет доминирующему фолликулу завершить своё созревание. Это приводит к новой течке и началу нового цикла.
Ряд авторов делят течковый цикл на две фазы – фолликулярную и лютеиновую (рисунок 69).
Фолликулярная фаза включает три стадии: проэструс, эструс, метэструс. Лютеиновая фаза – диэструс.
Наиболее благоприятное время осеменения – спустя 8…12 ч после начала охоты, то есть во второй её половине. Во второй половине охоты в матке начинается всасывающий процесс (подобно вакуум-насосу).
