
-
получение гомозиготных, диплоидных потомков;
-
создание партеногенетических животных.
Пересадка ядер из соматических клеток в энуклеированную яйцеклетку . Кариотип дифференцированных клеток не отличается от кариотипа зиготы, поэтому возможна пересадка их генома в энуклеированную яйцеклетку.
В 1987 году была проведена пересадка ядер у крупного рогатого скота (Robl J., 1987). В этом опыте из зигот удаляли пронуклеусы, пересадка пронуклеусов в энуклеированную яйцеклетку реципиента осуществлялась с помощью диэлектро-форетического слияния клеток. Из 29 реконструированных яйцеклеток 5 достигли стадии морулы или бластоцисты при инкубации в перевязанных яйцепроводах овец. Два эмбриона, находящихся на стадии бластоцисты, были извлечены из яйцепровода овцы и пересажены двум коровам, стельность которых закончилась рождением двух здоровых телят.
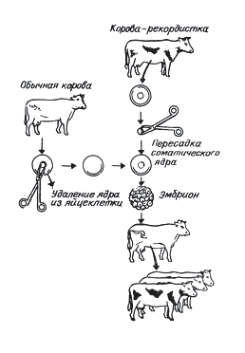
Схема получения клонов методом пересадки соматических ядер, по Б. П. Завертяеву.
Анализ результатов опыта показал, что пересадка ядер может успешно применяться на ранних эмбрионах коров, что позволит создать популяции коров, обладающих выдающимся генотипом матери (рисунок 80). Немаловажное значение имеет и то обстоятельство, что отпадает необходимость проверки эмбрионов по полу, так как трансплантация диплоидного ядра из соматической клетки в зиготу автоматически связана с регуляцией пола.
Клонирование крупного рогатого скота на основе трансплантации диплоидных соматических клеток в энуклеированную зиготу, несмотря на большую сложность, остаётся перспективным направлением биотехнологии.
Получение гомозиготных диплоидных потомков . В селекции животных при чистопородном разведении традиционно используют линейное разведение, целью которого является поддержание высокого генетического сходства с выдающимся родоначальником. Это достига-
ется путём умеренного инбридинга и целенаправленного отбора. Имея высокую степень гомозиготности, животные таких линий отличаются большим генетическим сходством, а внутри линии создаётся высокая фенотипическая однородность.
Но на создание заводских линий затрачивается много времени, так как это связано с расщеплением и рекомбинацией генов, низкой плодовитостью и большим интервалом между генерациями. Так, генетическое сходство потомков с родоначальником при отсутствии инбридинга с каждым поколением уменьшается вдвое.
Используя метод клонирования, можно получить гомозиготных диплоидных потомков без расщепления генов в течение одного поколения. Метод клонирования во многом сходен с методом пересадки ядер из соматических клеток в энуклеированную зиготу. Но если в последнем случае получают гетерозиготных диплоидных потомков, то на основе удаления мужского или женского пронуклеусов из зиготы и последующей диплоидизации оставшегося пронуклеуса получают диплоидных потомков, полностью гомозиготных по всем генам одного из родителей.
Сущность данного метода состоит в том, что из зиготы, находящейся на стадии двух пронуклеусов, микрохирургически удаляют мужской или женский пронуклеусы, в результате чего в ней остаётся только один гаплоидный набор хромосом – мужской или женский. Так, при удалении из зиготы мужского пронуклеуса развитие зародыша с гаплоидным набором хромосом происходит до стадии поздней морулы и даже ранней бластоцисты. Однако для развития зиготы, содержащей гаплоидный набор хромосом, требуется её активация или восстановление диплоидного набора. С этой целью проводят кратковременную инкубацию гаплоидной зиготы в растворе с цитохалазином В, блокирующим первое клеточное деление, но активизирующее деление ядра и диплоидизацию оставшегося пронуклеуса. С. Markert и R. Petters (1977), используя изложенный метод, получили эмбрионы мышей, находящиеся на стадии развития бластулы, с диплоидным набором хромосом.
Изложенный метод клонирования позволяет получать только женских особей, хотя одни потомки будут гомозиготны по генам матери, а другие – по генам отца. Это связано с тем, что гомозиготные дипло-
178
идные эмбрионы, в геноме которых имеются отцовские гены с двумя YY -хромосомами, летальны.
Схема получения гомозиготных диплоидных животных на основе использования микрохирургии зиготы, разработанной на мышах, представлены на рисунке 81. Проведенные опыты с реципрокными
пересадками пронуклеусов между зиготами мыши показали, что у млекопитающих для нормального развития эмбриона вплоть до рождения необходимы как мужские, так и женские пронуклеусы: отцовский геном требуется для формирования внезародышевых тканей, материнский – для прохождения определенных стадий эмбриогенеза.
Создание партеногенетических животных . Под партеногенезом понимают развитие эмРисунок 81. бриона из женской гаметы без участия мужской Экспериментальная схема получения гомозиготных жиполовой клетки. Из этого определения видно, вотных, по Б. П. Завертяеву. что партеногенетические особи в хромосомах содержат только гены матери. То есть, партеногенез принимает форму бесполого размножения у животных с половым способом воспроизведения. Естественный партеногенез выявлен у насекомых, ракообразных, некоторых пресмыкающихся и у индеек. Искусственный партеногенез возможен только путём стимуляции партеногенетического развития яйцеклетки. В качестве активаторов сейчас используются механические воздействия, тепловой, электрический или осмотический шок, ферменты (гиалуронидаза, трипсин, проназа), асептики (этанол, тетракаин, прокаин) и проч. Но, несмотря на проведённые исследования, механизм партеногенетического развития у крупного рогатого скота остаётся не познанным.
Таким образом, клонирование – один из методов создания генетических линий и популяций идентичных особей с нужными генотипами для эффективного производства молока и мяса в промышленном скотоводстве. Создание клонов животных можно рассматривать как эффективную биотехнологию будущего племенного и пользовательного скотоводства.
