
Таблица 137. Рекомендуемое обеспечение молочных коров переваримым протеином [84]
| Жир, % | На поддержание жизни 11,5–12,5 г На образование молока Белок, % | ||||
|---|---|---|---|---|---|
| 3,0 | 3,2 | 3,4 | 3,6 | ||
| 3,5 | 26,3 | 27,6 | 29,0 | 30,3 | |
| 4,0 | 24,6 | 25,9 | 27,1 | 28,3 | |
| 4,5 | 23,1 | 24,3 | 25,5 | 26,7 | |
Приведенные данные свидетельствуют о высоких требованиях к составу рациона при кормлении высокопродуктивных коров.
Попадающим в кишечник доступным сырым протеином является в первую очередь микробный протеин и, в меньшей степени, нерасщепляемый протеин корма. Количество микробного протеина, поступающего в кишечник, зависит от количества микрофлоры в рубце, ее состава и скорости эвакуации его содержимого в последующие отделы пищеварительного тракта. Для образования микробного протеина решающим фактором является наличие необходимой для микробов энергии и достаточное обеспечение азотом, фосфором и серой. В связи с тем, что рост микробов является постоянным процессом, необходимо, чтобы энергия и все компоненты питания были сбалансированы (синхронное обеспечение питательными веществами и энергией).
Таким образом, важным источником обеспечения организма коровы протеином является микробный протеин. Это подтверждается классическим экспериментом, проведенным в Швеции еще в 1960-х годах. Пищевой рацион коровы совсем не содержал протеина, а в качестве источника азота использовался аммиак.
В результате коровы давали около 5000 кг молока за период лактации, производили в среднем по 580 г высококачественного молочного белка ежедневно. Это свидетельствует о том, что микроорганизмы рубца могут использовать для своего роста аммиак в качестве единственного источника азота и, в конечном итоге, произвести все аминокислоты, необходимые для синтеза молочного жира.
Аммиак используется многими видами бактерий для синтеза аминокислот, которые включаются в бактериальный белок. Аммиак редко ограничивает рост бактерий (т. е. синтез бактериального белка) потому, что микроорганизмы, как указано выше, являются очень хорошими утилизаторами аммонийных солей, кроме того, коровы обладают механизмом сохранения и вторичного использования азота через слюну. Аммиак, который не использовался бактериями, всасывается через стенки рубца
в печень, где он преобразуется в мочевину. Этот «лишний азот» затем может вторично попасть в рубец через слюну или выделиться через почки вместе с мочой. Подсчитано, что около 15 % азота используется, попадая в слюну в виде мочевины. Это является эффективным механизмом «сбережения» белка, когда рацион содержит его в недостаточном количестве (рис. 56).
Впитанные в
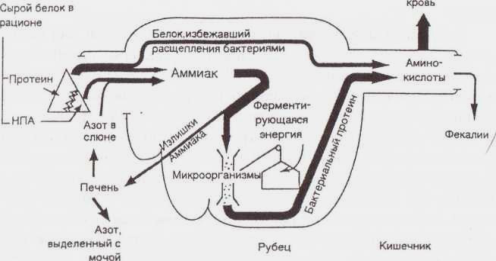
Однако для высокопродуктивных коров с удоем свыше 5000 кг молока за лактацию бактериального белка недостаточно для образования молока. Необходимо значительное потребление кормового белка, включающего растворимый белок, устойчивый к бактериальным ферментам (защищенный белок), о чем подробно будет изложено далее.
Итак, животные нуждаются в расщепляемом в кишечнике протеине корма. Количество его зависит от уровня ферментации. При этом между нерасщепляемым в кишечнике протеином корма и микробным протеином существует взаимосвязь. Для молочной коровы необходимым является только переваримая часть поступающего в кишечник сырого протеина. Аминокислоты, которые через кровь попадают к месту их использования, необходимы для образования молока. Небольшая часть аминокислот используется для образования мышечного белка. Это относится, прежде всего, к растущим животным по первой лактации. Аминокислоты могут также использоваться в энергетическом плане и служить исходным материалом для образования молочного сахара.
Вместе с тем установлено, что интенсивность использования аминокислот корма для обеспечения ими организма животного может быть неодинаковой, поэтому считается необходимым учитывать это обстоятельство при оценке качества протеина. В связи с этим исследования, направленные на изучение потребности в аминокислотах высокопродуктивных коров, в последнее время
сконцентрированы на возможности повышения обеспечения животных нерасщепляемым протеином корма, т. е. на учете интенсивности его распада в рубце. При этом следует учитывать, что преобладающая часть доступного сырого протеина при высокой молочной продуктивности происходит из микробного протеина.
Известно, что энергия, выделяемая при ферментативных процессах в рубце, является решающим фактором уровня микробного синтеза протеина. По данным X. Шинкерса и М. Родехутскорда [84], средняя величина микробного протеина на 1 МДж обменной энергии, образующейся в результате ферментации, равна 10,1 г (при отклонениях ±1,5). Недостаток определенных питательных веществ (например, серы или фосфора) может повлечь за собой существенное снижение эффективности микробного синтеза.
Естественно, на эффективность синтеза могут воздействовать и другие факторы. Как уже отмечалось, эффективность микробного синтеза при скармливании рационов с высоким процентом стабильного в рубце крахмала (например, кукурузы) ниже. Из этого становится очевидным, что доля концентратов в рационе оказывает существенное влияние на интенсивность микробного синтеза.
В связи с этим авторы сделали предположение о том, что указанный механизм может определяться составом популяции микрофлоры и продолжительностью ее пребывания в рубце. Авторы считают, что основная роль в данном процессе принадлежит простейшим, хотя их число должно составлять не более 50 % биомассы рубца. Простейшие из-за своей высокой протеолитической активности в значительной степени способствуют распаду протеина в рубце, поэтому снижение их численности может способствовать повышению притока нерасщепленного протеина корма в двенадцатиперстную кишку.
Уровень питания, продолжительность нахождения пищевой массы в рубце, величина pH, а также частота кормления могут влиять на эффективность микробного синтеза. Например, при почти одинаковом потреблении сырого протеина добавка кукурузы во влажном состоянии к основному рациону из люцерны оказывала положительное влияние на образование молочного белка.
Установлено, что уровень аминокислот в микробном протеине в определенной степени постоянен. Однако предпочтение отдается отдельным незаменимым аминокислотам. Например, повышение инфузии лизина в двенадцатиперстную кишку способствует увеличению образования молочного белка, поэтому при высокой продуктивности коров приобретает значение аминокислотный состав протеина корма. Однако сведения по этому вопросу весьма ограничены, что требует дополнительных исследований с различными типами рационов по изучению прохождения отдельных незаменимых аминокислот в двенадцатиперстную кишку и эффективности микробного синтеза при различном аминокислотном составе корма.
