
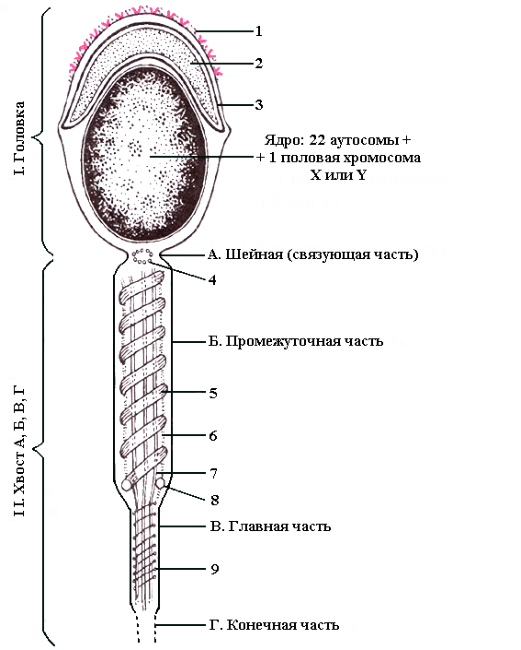
содержащий гидролитические ферменты. Запас ферментов в акросомном пузырьке служит для проникновения спермия через наружные оболочки яйцеклетки (рисунок 5).
-
I - головка; II - хвост; 1 - рецептор гликозилтрансфераза; 2 - акросомальная гранула; 3 - «чехлик»; 4 - проксимальная
-
центриоль; 5 - митохондрия; 6 - слой упругих фибрилл; 7 -
-
аксонема; 8 - дистальная центриоль; 9 - циркулярные фибриллы.
6.1.4. Оплодотворение
Процесс оплодотворения яйцеклетки происходит в ампулярной части яйцевода, куда доходит небольшое количество спермиев, хотя при эякуляции в половой тракт самки попадает до нескольких миллиардов спермиев. Период времени, в течение которого овулировавшие яйцеклетки способны оплодотвориться, различен у разных видов млекопитающих, но обычно не превышает 24 час. Примерно за это же время спермии утрачивают оплодотворяющую способность, находясь в половом тракте самки.
У млекопитающих оплодотворение внутреннее, поэтому половые пути самки принимают активное участие в этом процессе. После эякуляции, спермии, для приобретения способности к оплодотворению, должны пройти процесс капацитации. При этом у них происходят изменения структуры липидов клеточной мембраны, что выражается в изменении соотношения холестерина и фосфолипидов. Снижение содержания холестерина дестабилизирует мембрану акросомного пузырька, что является необходимым условием для слияния мембран.
Известно, что важнейшим признаком прошедшей капацитации является приобретение спермием способности узнавать прозрачную оболочку ооцита. В то время, как на поверхности спермия, не прошедшего капацитацию, присутствуют углеводы («coating factors»), которые препятствуют его прикреплению к яйцеклетке. Эти углеводы представляют собой полимер из повторяющихся остатков галактозы и N-ацетилглюкозамина. Они блокируют рецепторы спермия, в виде молекулы фермента N- ацетилглюкозамингалактозил-трансферазы (гликозилтрансферазы), опознающие зону пеллюцида. Молекулы гликозилтрансферазы встроены в плазматическую мембрану спермия непосредственно над акросомой, причем их активные центры обращены наружу. При капацитации
гликозилтрансфераза узнает N-ацетилглюкозаминовые остатки белков прозрачной оболочки.
При капацитации блокировавшие фермент углеводы убираются и молекулы гликозилтрансферазы, на поверхности спермия, обнажаются. В норме этот фермент катализирует присоединение активированных остатков галактозы к углеводной цепи, оканчивающейся N-ацетилглюкозамином. Однако в половых путях самки активированные остатки галактозы отсутствуют. Поэтому гликозилтрансфераза спермия просто присоединяется к N-ацетилглюкозаминовым остаткам белков прозрачной оболочки яйцеклетки. Таким образом, по типу ключ-замок прикрепляется спермий к ооциту.
Акросомная реакция приводит к выделению ферментов, лизирующих связи между фолликулярными клетками, окружающими ооцит (рисунок 6.) Ферменты, выделенные из акросомного пузырька, называют лизинами. Они включают гиалуронидазу, расщепляющую гиалуроновую кислоту матрикса, и фермент, рассеивающий клетки лучистого венца. Кроме того, спермии содержат акрозин, разрушающий прозрачную оболочку в месте прикрепления.
Морфологическим выражением акросомной реакции является разрыв акросомного пузырька, который происходит в результате кальций-зависимого слияния наружной акросомной мембраны и прилежащей к ней плазматической мембраны спермия в передней половине головки. Во время акросомной реакции плазматическая мембрана, покрывающая постакросомальную область головки (ее экваториальный сегмент), приобретает свойства, делающие возможным слияние этой части плазматической мембраны спермия с плазматической мембраной яйцеклетки.
