
ГЛАВА 7. ПРЕДИМПЛАНТАЦИОННОЕ РАЗВИТИЕ И МОРФОЛОГИЧЕСКАЯ ОЦЕНКА КАЧЕСТВА ООЦИТОВ И ЭМБРИОНОВ
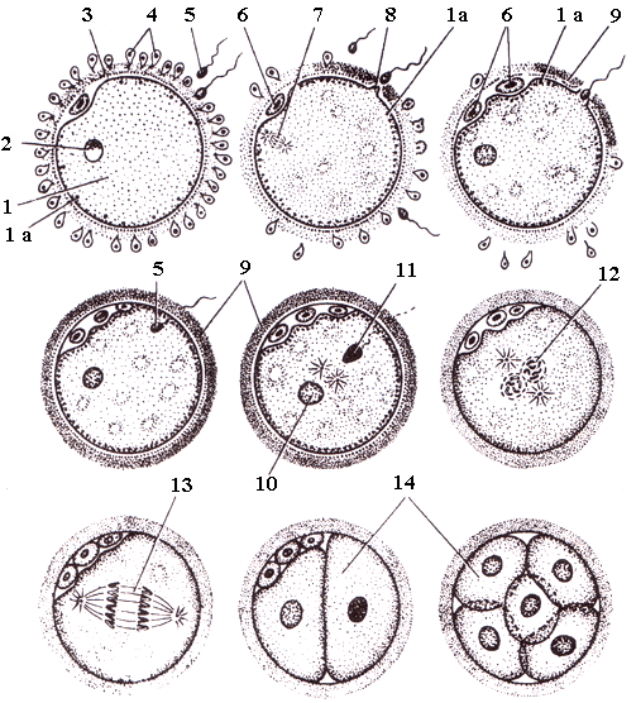
Созревание ядра яйцеклетки начинается после оплодотворения и длится до образования двух пронуклеусов. На этой стадии из ооцита образуется зигота. Гаплоидный материал ядра клетки, который образовался после деления и созревания в яйцеклетке, образует женское пред-ядро - женский пронуклеус. Одновременно головка сперматозоида, также с гаплоидным набором хромосом, образует мужской пронуклеус, которые имеет большие размеры, чем женский. При постоянном увеличении объема оба пронуклеуса приближаются друг к другу. В момент самой большой аппроксимации (сближения) пронуклеусов исчезают их мембраны, и образованные в метафазе хромосомы собираются вместе, как при делении ядра при митотическом делении. Оплодотворенная яйцеклетка - это начальная эмбриональная фаза.
Деление бластомеров эмбриона происходит синхронно, так что при каждом дроблении количество бластомеров удваивается.
До середины 2-клеточной стадии зародыши полностью зависят от ооплазматических запасов белков и м-РНК. С середины 2-клеточной стадии активируются гены зародыша. В это же время начинают разрушаться м-РНК ооцита, но белки, транслированные с этих м-РНК сохраняются до стадии бластоцисты, а некоторые и позже. В конце двухбластомерной стадии в некоторых ядрах появляются типичные ядрышки, то есть активируются рибосомальные гены зародыша. Эти гены, на данной стадии, экспрессируются и в основном они необходимы для поддержания жизнедеятельности клеток. Ядра, находясь под контролем цитоплазматических факторов яйца, выполняют преимущественно функции клеточных органоидов, обеспечивающих упорядоченность дробления.
До стадии развития в 16 клеток бластомеры располагаются свободно друг от друга и легко различимы. Во время
последующих двух делений, в ходе которых возникает морула, бластомеры (от 16 до 64) начинают уплотнятся. Этот процесс называется компактизацией. Компактизация, представляет самое важное отличие дробления зародышей от всех других типов дробления.
Известно, что плазматическая мембрана каждого бластомера покрыта микроворсинками, которые возникают, благодаря образованию актиновых микрофиламентов. При помощи микроворсинок соседние бластомеры прикрепляются друг к другу. Медиаторами межклеточной адгезии служат гликопротеины, функционирующие на поверхностях микроворсинок. Одним из этих гликопротеинов является увоморулин. Антитела к увоморулину вызывают декомпактизацию бластомеров. При компактизации происходит уплощение контактирующих поверхностей соседних бластомеров, микроворсинки укорачиваются путем деполимеризации актина. Таким образом, бластомеры приобретают полярность, которая выражается в наличии микроворсинок только на наружной части их мембран, не контактирующей с другими бластомерами, а также в асимметричном расположении внутриклеточных компонентов.
Плоскость следующего деления ориентирована так, чтобы использовать эту асимметрию для создания двух различных потомков поляризованного бластомера - полярной клетки, которая располагается снаружи морулы, и аполярной, расположенной внутри нее. Так, клетки компактизированного зародыша делятся и образуют 16- и 32-клеточную морулу. После компактизации тесная упаковка бластомеров стабилизируется более совершенными межклеточными контактами: внутри морулы, между клетками, возникают щелевые контакты (они образуются сразупосле компактизации, в конце 8-клеточной стадии) а на поверхности морулы образуются плотные контакты, что приводит к изоляции внутренних клеток морулы.
Во время 6-го - 7-го делений дробления морула преобразуется в бластоцисту (зародышевый пузырек). Стадия бластоцисты играет важную роль, так как при преобразовании
