
| Церулоплазмин | Cp | A, B, C |
|---|---|---|
| Постальбумин | Pa(GC) | A, B, C |
| Посттрансферрин 1 | Ptf-1 | F, S |
| Посттрансферрин 2 | Ptf-2 | F, S |
| Трансферрин | Tf | (H, GKe), A(B), D1, D2 (F, N), E (GSA, I, J) |
| Эритроциты | ||
| Кислая фосфатаза | Aср | |
| Карбоангидраза | Ca | (C), F, S, (SPi), Z |
| Эритроцитарный белок 1 | Ery-1 | A, B |
| Эритроцитарный белок 2 | Ery-2 | A, B |
| Гемоглобин | Hb | B, C, A, D (H, X, Y, E, G) |
| Пептидаза | Pep-D | |
| Фосфоглюкомутаза | Pg-1 | A, B |
| Пуриннуклеозидфос- форилаза | Np | HF, HS, L |
| Лейкоциты | ||
| Аденозиндеаминаза | Ada | A, B, C, D |
| Щелочная рибонуклеа- за (-Leu-1) | Rnase | A, B |
| Глутаминощавелево- кислая трансаминаза | Got-1 | A, B |
| Лейкоцитарный белок 2 | Leu-2 | A, B |
| Малатдегидрогеназа | Mor-1 | A, B |
| Манноза-6-фосфатизо- мераза | Mpi | A, B, C |
| 6-фосфоглюконатдеги- дрогеназа | Pgd | A, B |
Биохимические полиморфные системы белков, как и группы крови, используются для следующих целей:
– изучения причин и динамики генотипической изменчивости, составляющей основу эволюционной генетики;
– изучения геногеографии различных видов и пород;
106
– описания межпородной и внутрипородной дифференциации, изучения филогенеза и аллелофонда пород, линии и семейств, а также генетических процессов в популяциях сельскохозяйственных животных и изменение их генетической структуры в процессе селекции;
-
уточнения происхождения животных;
-
определения моно- и дизиготности двоен;
-
построения генетических карт хромосом;
-
подбора гетерозисной сочетаемости;
-
выявления связи с продуктивностью и резистентностью к заболеваниям;
-
использования биохимических полиморфных систем в качестве ге-
-
нетических маркеров при селекции животных.
Между породами, отродьями, линиями и семействами установлены различия по частоте аллелей многих белковых полиморфных систем. Один из таких примеров приведён в таблице 22. Наименьшая частота аллеля Ат-1В характерна для животных ярославской породы (0,365), тогда как у белоголовой украинской она значительно выше (0,722).
Таблица 22 – Частота аллелей амилазного локуса ( Ат-1В ) у некоторых пород крупного рогатого скота СССР (Колесник, 1972).
| Порода | Число | Частота аллелей | |
|---|---|---|---|
| животных | Ат-1В | Ат-1С | |
| Чёрно-пёстрая | 1446 | 0,627 | 0,373 |
| Голландская | 68 | 0,434 | 0,566 |
| Холмогорская | 172 | 0,514 | 0,486 |
| Айрширская | 315 | 0,556 | 0,444 |
| Красная степная | 142 | 0,630 | 0,370 |
| Швицкая | 90 | 0,583 | 0,417 |
| Ярославская | 460 | 0,365 | 0,635 |
По данным С. А. Петрушки (1970), в Белоруссии частота аллеля β-LgA в 2 раза выше у животных голландской и симментальской пород (0,514 и 0,436) в сравнении с бурой латвийской (0,210). Многие европейские породы имеют очень низкую частоту аллелей трансферрина В и F.
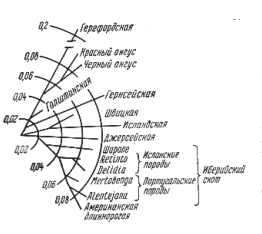
Используя генные частоты, можно вычислить генетические дистанции между породами и определить их эволюционную взаимосвязь. Анализ этих дистанций показал тесную взаимосвязь среди двух испанских и двух португальских пород, а также их связь с американским длиннорогим скотом (рисунок 55).
Сделано предположение, что длиннорогий скот происходит от португальских пород. Все 5 пород иберийского скота, имеющих сходное происхождение, отличаются от других 9 европейских пород. На основании генетических дистанций построено филогенетическое древо пород, где длина каждого сегмента пропорциональна времени дивергенции (в поколениях) пород.
Использование полиморфных систем белков вместе с группами крови повышает точность определения происхождения животных и диагностики монозиготности близнецов (А. А. Лазовский, 1987, и др.).
Ю. А. Шапиро (1984) изучил полиморфизм белков эякулята у быков-производителей 7 пород. Установлен генетический детерминируемый полиморфизм по 7 типам белка и эстеразам трикар-боновых кислот. Обнаружена корреляция между типами эстераз и свободными сульфгидрильными группами, между количеством полиморфных систем белка эякулята быков-производителей и нарастанием титра антител у многократно перекрывающихся коров. Полиморфные белки эякулята рассматриваются как антигенные факторы, способствующие образованию иммунологического барьера при оплодотворении у многократно перекрывающихся маток.
