
– описания межпородной и внутрипородной дифференциации, изучения филогенеза и аллелофонда пород, линии и семейств, а также генетических процессов в популяциях сельскохозяйственных животных и изменение их генетической структуры в процессе селекции;
-
уточнения происхождения животных;
-
определения моно- и дизиготности двоен;
-
построения генетических карт хромосом;
-
подбора гетерозисной сочетаемости;
-
выявления связи с продуктивностью и резистентностью к заболеваниям;
-
использования биохимических полиморфных систем в качестве ге-
-
нетических маркеров при селекции животных.
Между породами, отродьями, линиями и семействами установлены различия по частоте аллелей многих белковых полиморфных систем. Один из таких примеров приведён в таблице 22. Наименьшая частота аллеля Ат-1В характерна для животных ярославской породы (0,365), тогда как у белоголовой украинской она значительно выше (0,722).
Таблица 22 – Частота аллелей амилазного локуса ( Ат-1В ) у некоторых пород крупного рогатого скота СССР (Колесник, 1972).
| Порода | Число | Частота аллелей | |
|---|---|---|---|
| животных | Ат-1В | Ат-1С | |
| Чёрно-пёстрая | 1446 | 0,627 | 0,373 |
| Голландская | 68 | 0,434 | 0,566 |
| Холмогорская | 172 | 0,514 | 0,486 |
| Айрширская | 315 | 0,556 | 0,444 |
| Красная степная | 142 | 0,630 | 0,370 |
| Швицкая | 90 | 0,583 | 0,417 |
| Ярославская | 460 | 0,365 | 0,635 |
По данным С. А. Петрушки (1970), в Белоруссии частота аллеля β-LgA в 2 раза выше у животных голландской и симментальской пород (0,514 и 0,436) в сравнении с бурой латвийской (0,210). Многие европейские породы имеют очень низкую частоту аллелей трансферрина В и F.
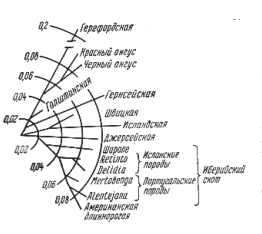
Используя генные частоты, можно вычислить генетические дистанции между породами и определить их эволюционную взаимосвязь. Анализ этих дистанций показал тесную взаимосвязь среди двух испанских и двух португальских пород, а также их связь с американским длиннорогим скотом (рисунок 55).
Сделано предположение, что длиннорогий скот происходит от португальских пород. Все 5 пород иберийского скота, имеющих сходное происхождение, отличаются от других 9 европейских пород. На основании генетических дистанций построено филогенетическое древо пород, где длина каждого сегмента пропорциональна времени дивергенции (в поколениях) пород.
Использование полиморфных систем белков вместе с группами крови повышает точность определения происхождения животных и диагностики монозиготности близнецов (А. А. Лазовский, 1987, и др.).
Ю. А. Шапиро (1984) изучил полиморфизм белков эякулята у быков-производителей 7 пород. Установлен генетический детерминируемый полиморфизм по 7 типам белка и эстеразам трикар-боновых кислот. Обнаружена корреляция между типами эстераз и свободными сульфгидрильными группами, между количеством полиморфных систем белка эякулята быков-производителей и нарастанием титра антител у многократно перекрывающихся коров. Полиморфные белки эякулята рассматриваются как антигенные факторы, способствующие образованию иммунологического барьера при оплодотворении у многократно перекрывающихся маток.
Л. С. Жебровский (1979) на большом материале показали, что ген χ - СпА во всех стадах связан с повышенной молочностью. Таким же эффектом обладает аллель β - LgA , однако одновременно он снижает содержание жира в молоке коров чёрно-пёстрой породы. Возможно, одновременный учёт многих генетических систем позволит обнаружить более тесные взаимосвязи с продуктивностью. Самое высокое содержание белка (3,42 и 3,41 %) – в молоке коров с фенотипом αs1 - CnB , β - СnAВ , χ-СпВ , β - LgB и αs1 - CnB , β - СnAВ , χ - СпA , β - LgB .
Меньше исследований проведено по связи биохимического полиморфизма с устойчивостью к болезням, хотя здесь можно ожидать более тесные ассоциации.
Кожа и её производные. Одним из важных объектов интерьерных исследований служат кожа и её производные . Гистологическое строение кожи, соотношение отдельных слоёв и развитие кровеносных сосудов в определённой мере характеризуют тип конституции животного и направление его продуктивности. У животных сухой, нежной конституции кожа имеет слаборазвитый подкожный слой, у животных сырого типа, наоборот, подкожная соединительная ткань сильно развита.
Масса кожи животных в возрасте двух лет и старше составляет 5…6 % их живой массы, у молодняка же до года – 8…12 %, а до двух лет – 6…7 %. У животных полутора лет и старше на 1…1,5 кг живой массы приходится 1 дм2 площади кожи. С повышением упитанности животного все показатели кожного покрова возрастают.
Толщина кожи на различных участках тела неодинакова. Наиболее толстая кожа обнаружена по линии верха животного. Толщина её резко снижается по направлению сверху вниз, достигая максимального утончения в области живота.
У взрослых коров средней упитанности микроструктура кожи следующая: эпидермис (или надкожица) – верхний слой кожи (1…3 %); собственно кожа, разделяющаяся на сосочковый (32…40 %) и сетчатый (42…54 %) слои; подкожная клетчатка – 11…20 %.
Мало изучены изменения кожи в зависимости от породы, условий содержания, кормления, климата, рельефа местности и т. д. Между тем
