
рованием стадии возбуждения. Реципиенты должны быть в состоянии средней упитанности, с хорошим физическим развитием, иметь крупный, правильной формы таз. Яичники и матка должны быть нормально развиты, без патологических изменений.
После пересадки реципиенту должны быть обеспечены оптимальные условия для дальнейшего развития эмбриона и рождения жизнеспособного плода.
При пересадке эмбрионов состояние всего организма и половой системы реципиента, в том числе состояние яичников, фаза дифференцировки эндометрия, должны соответствовать стадии развития эмбрионов. Только в этом случае последние попадают в условия, благоприятные для их приживления и развития. Если разница в сроках проявления полового цикла между донором и реципиентом составляет более 24 часов, то частота беременностей после пересадок резко снижается. Пересадку зародышей в производственных условиях лучше проводить при точной синхронности полового цикла у доноров и реципиентов. Результаты 2556 пересадок зародышей показали, что при точной синхронизации доноров и реципиентов беременность после пересадки развивалась у 67 % животных. Если охота у реципиента была на 12 часов раньше или позже, чем у донора, беременность устанавливали у 60…61 % реципиентов.
Пересадку зародышей реципиентам удавалось осуществить только до 16-го дня после выявления охоты. В более поздние сроки беременность не развивается, так как начинается обратное развитие жёлтого тела и в проводящих половых путях протекают процессы разрушения и обновления слизистых оболочек и подготовки их к очередной стадии возбуждения полового цикла. При небольшом количестве животных-реципиентов возникает необходимость в синхронизации полового цикла у реципиентов и доноров путём использования простагландинов и гестагенов. Через 2…3 дня после применения этих препаратов коровы и тёлки приходят в охоту. Несвоевременное выявление животных в охоте снижает процент развития беременности после пересадки эмбрионов.
При использовании замороженных эмбрионов нет необходимости в синхронизации полового цикла реципиентов и доноров. В этом случае эмбрионы можно пересаживать в сроки, когда у реципиентов естественно наступят соответствующие дни полового цикла.
Для пересадки эмбрионы подготавливают в стерильной тонкой трубочке диаметром 1 мм и объёмом 0,25 мл. Присоединив шприц к трубочке со стороны фильтра, набирают столбик среды для культивирования (высотой 1 см), затем такой же столбик воздуха и среду с зародышем (контролируя под бинокулярной лупой). После этого вновь набирают столбик воздуха и среду для культивирования. Набранная в трубочку среда достигает фильтра с поливиниловым спиртом; фильтр набухает и больше не пропускает воздух, поэтому из пластиковой соломинки ничего не вытекает. Подготовленную трубочку с эмбрионом вставляют в стерильный прибор для пересадки. Прибор вводят во влагалище, через канал шейки матки и далее в рог матки ближе к его верхушке (примерно на глубину 10 см) (рисунок 78).
Затем содержимое из трубочки выталкивают движением внутреннего поршня и прибор быстро, но осторожно извлекают из матки.
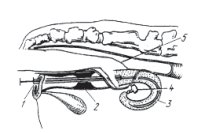
1 – прибор для осеменения, 2 – шейка и 3 – рог матки, 4 – яичник, 5 – рука, введённая в прямую кишку
Рисунок 78 – Введение эмбрионов в рог матки.
После подсадки животным создают условия кормления и содержания в соответствии с технологическими требованиями, не допускают травмирования и сильных отрицательных стрессовых воздействий. Через 2 месяца после пересадки проводят диагностику беременности ректальным способом.
Пересадка эмбрионов является одним из способов получения большого количества телят высокопродуктивных животных, но гарантии, что полученное потомство будет повторять или превосходить по продуктивности своих родителей, нет.
172
Искусственное получение однояйцевых близнецов
Решение проблемы копирования генотипов высокопродуктивных животных обусловлен прежде всего разработкой новых способов получения генетически идентичных животных. Крупный рогатый скот характеризуется малой частотой двойнёвости, ещё реже встречаются однояйцевые двойни. Низкие показатели частоты двойнёвости и её наследуемости не позволяют рассчитывать на высокую эффективность селекции.
Разделение ранних эмбрионов на два или более бластомеров, способных развиваться в процессе всего онтогенеза, с последующей пересадкой их реципиентам повышает выход телят минимум в 2 раза.
Всех близнецов можно разделить на два типа: двуяйцевые (дизиготные) и однояйцевые (монозиготные). Двуяйцевые близнецы возникают в результате оплодотворения двух яйцеклеток разными спермиями. Однояйцевые – путём разделения зиготы таким образом, что обе половины отделяются друг от друга и развиваются в отдельные эмбрионы. Разделение эмбриона на две части происходит на 2- или 8-клеточных стадиях эмбрионального развития. Другим механизмом возникновения монозиготных двоен является расщепление эмбриобласта внутри бластоцисты.
С генетической точки зрения возникновение монозиготных близнецов связано с копированием генотипов. Принципиальный механизм спонтанного возникновения монозиготных двоен может быть использован для искусственного получения однояйцевых двоен, представляющих собой генетические копии.
Первые монозиготные близнецы крупного рогатого скота были получены в 1981 году С. Вилладсеном с сотрудниками.
Для получения монозиготных двоен 8…10-суточные эмбрионы, находящиеся на стадии бластоцисты, разделяют тонким металлическим ножом точно посредине трофобласта и эмбриобласта (рисунок 79).
На деление одной бластоцисты затрачивается всего 1 минута. После 2…4-часового культивирования при 37 °С половинки эмбрионов по-
