
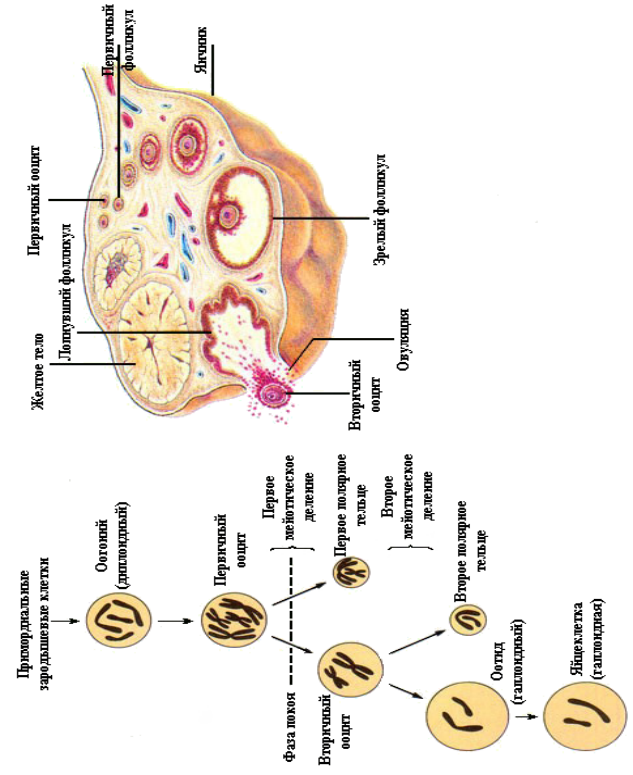
Незадолго до овуляции происходит кратковременный, но резкий подъем уровня ЛГ, а также некоторое увеличение уровня ФСГ. Возможно, этот пик выделения в кровь ЛГ и является тем стимулом, который снимает блокаду мейоза. Таким образом, созревание ооцита представляет собой комплексную, точно определенную смену структурно-морфологических, физиометаболических и биохимических процессов, как в ядре и цитоплазме, так и в самом фолликуле, охватывающем ооцит. Только физиологическое созревание ядра, цитоплазмы и фолликула в состоянии обеспечить ооциту способность к нормальному оплодотворению и эмбриональному развитию.
Первым морфологическим признаком созревания ядра является разрушение зародышевого пузырька. Одновременно с этим конденсируется хроматин и образуется хорошо видимые в микроскоп хромосомы (стадия диакинеза). После дальнейшего сжатия хромосом образуются нити веретена деления, и хромосомы попарно подтягиваются в середину веретена (стадия метафазы). Мейотическое веретено передвигается к периферии ооцита, и парные гомологические хромосомы расходятся (стадия телофазы). Происходит образование и деление первого полярного тельца (стадия телофазы), которым и заканчивается 1- ое мейотическое деление.
Второе мейотическое деление созревания ооцитов продолжается до стадии метафазы. Хромосомы в ооцитах располагаются в метафазных пластинках и остаются так до оплодотворения ооцитов 2 порядка. Параллельно с созреванием ядра в ооцитах происходит созревание цитоплазмы.
Структурное созревание цитоплазмы находится в прямой зависимости от созревания ядра и образования веретена деления и рассматривается как признак метаболической активности ооцитов, изменения положения, структуры и числа клеточных органелл и включений, в том числе равномерного распределения митохондрий, увеличения и периферийного расположения кортикальных гранул.
Известно, что в процессе морфологического изменения цитоплазмы происходит ряд качественных изменений
протеиновой модели, которая находится в тесной связи с физиологическим созреванием ооцита. Синтез новых белков в цитоплазме ооцитов имеет определенное влияние на их оплодотворяемость, дальнейшее развитие и зависит от соотношения цито- и нуклеоплазмы ко времени разрушения зародышевого пузырька, после чего в цитоплазме активируется матричная РНК. Рядом исследований установлено, что пока в ооцитах не разрушился зародышевый пузырек, протоплазма не способна трансформировать головку спермия в пронуклеус. Эта способность зависит от смешивания кариоплазмы зародышевого пузырька с цитоплазмой ооцита. По некоторым данным предполагается, что эта часть цитоплазматического созревания зависит от созревания ядра. По мнению других авторов, причиной недостаточного созревания цитоплазмы является недостаточное обеспечение ооцита стероидами через фолликулы. По мнению Leibfried M.L. и Bavister B.D., немаловажную роль в регуляции созревания цитоплазмы играет и протеин.
На стадии метафазы II развитие яйцеклеток блокируется, и завершение мейоза в них происходит только после оплодотворения или искусственной активации.
6.1.3. Сперматогенез
Каждый спермий содержит гаплоидное ядро, двигательную систему, обеспечивающую перемещение ядра, и набор ферментов, необходимых для проникновения спермия в яйцо (рисунок 4) Большая часть цитоплазмы спермия элиминируется при его созревании, и сохраняются только некоторые органеллы, видоизмененные для выполнения спермием своей функции).
