
положил академик Н. П. Чирвинский. Дальнейшее развитие учение о закономерностях онтогенеза получило в работах А. А. Малигонова, Д. Хэммонда, Мак Кикена, В. А. Эктова и др.
Неравномерность индивидуального развития телят заключается в том, что прирост живой массы вначале происходит очень медленно, затем ускоряется и к концу роста снова замедляется. Д. А. Кисловский, В. Я. Бровар и другие считают, что у млекопитающих постоянная интенсивность роста наблюдается лишь в течение сравнительно короткого промежутка времени, причём период одной постоянной интенсивности, роста скачкообразно переходит в следующий, характеризующийся также постоянной, но уже другой интенсивностью.
Неравномерность роста животных тесно связана с периодичностью в их развитии.
Все периодические изменения в организме животных носят характер биологических ритмов.
В развитии молодняка крупного рогатого скота наблюдаются критические периоды, характеризующиеся особой чувствительностью организма к воздействиям внешней среды. Например, в период имплантации оплодотворенной яйцеклетки, в период плацентации, новорожденности, полового созревания чаще всего наблюдаются патологические сдвиги в развитии, то есть организм наиболее податлив ко всякого рода внешним воздействиям. С другой стороны, это самый удобный момент для вмешательства человека с целью направить развитие организма животного в желаемую сторону.
Явление ритмичности жизненных процессов в организме животных интересовало многих русских учёных. И. П. Павлов доказал, что определённая ритмичность в питании животного повышает стойкость пищевого рефлекса и аппетита, а однообразие и монотонность, так же как и перебои в кормлении, нарушают пищевой рефлекс, снижают аппетит.
Длительное однообразное воздействие неменяющихся факторов угнетает организм, ведёт к ослаблению приспособительных реакций и снижает жизнеспособность молодняка. Например, П. Д. Пшеничным и
другими исследователями установлено, что ритмичная смена окружающей температуры в стойловый период и смена дневной жары ночной прохладой при летнем лагерном содержании увеличивают интенсивность окислительно-восстановительных процессов в организме животных и повышаю устойчивость молодняка к заболеваниям. Подобные данные получены при кормлении телят высокопитательными кормами и содержании их в неотапливаемых помещениях, где температура воздуха зимой колебалась от + 3 до + 8 °С. Кроме того, животных ежедневно выпускали в выгульный дворик. При этом не отмечено ни одного случая заболевания, в том числе простудного происхождения. Молодняк чувствовал себя бодро, хорошо поедал корма и при условии увеличения питательности рациона на 20...25 % дави высокие (800...900 г) среднесуточные приросты.
Периодичность в развитии крупного рогатого скота тесно связана с скачкообразностью . Наиболее характерным скачком является смена эмбрионального развития на постэмбриональное, когда молодой организм в очень коротки промежуток времени (продолжительность отёла) из плода превращается в телёнка. При этом происходят значительные качественные его изменение. Подобным же образом, происходят переходы от одного периода развития к другому. В этом и заключается развитие от простого к сложному, от низшего к высшему, от молодого к взрослому.
В жизни животных имеются два периода развития эмбриональный и постэмбриональный. Под первым понимается период развития животных в теле матери с момента образования зиготы до рождения, под вторым – развитие от рождения до смерти.
Эмбриональное развитие крупного рогатого скота
Индивидуальное развитие животных в эмбриональный период зависит от породы, кормления и содержания родителей. Например, у коров джерсейской породы он продолжается в среднем 270 дней, ярославской – 276 симментальской – 280, абердин-ангусской – 285.
Во внутриутробном развитии различают три периода: предимплантационный, эмбриональный, плодный.
Предимплантационный период завершается у крупного рогатого скота через 10…12 суток после оплодотворения. Развитие зародыша начинается в верхней трети яйцепровода. После оплодотворения яйцеклетки спермием зигота в течение 24 часов подготавливается к первому митотическому делению.
Стадия дробления эмбриогенеза заключается в повторяющихся делениях зиготы. Образовавшиеся дочерние клетки называются бластомерами. Уже через 48 часов после овуляции зигота состоит из двух бластомеров (рисунок 82).
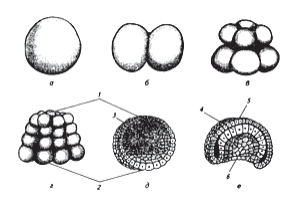
а – зигота; б – двухклеточная стадия; в – восьмиклеточная стадия; г – морула; д – бластула; е – гаструла; 1 – анимальный полюс; 2 – вегетативный полюс; 3 – бластоцель; 4 – энтодерма; 5 – эктодерма; 6 – полость первичной кишки
Рисунок 82 – Схема дробления и гаструляции.
Образование бластомеров продолжается и во время продвижения зиготы к одному из двух рогов матки. У коров зигота, обычно, направляется в тот рог матки, который ближе к овулировавшему яичнику.
Скорость движения оплодотворенной яйцеклетки в роге матки существенно снижается. Если первую треть яйцепровода зигота проходит приблизительно за 12 часов, то оставшиеся две трети – за трое суток. За это время эмбрион претерпевает несколько дроблений и при входе в матку он находится на стадии пяти-восьми бластомеров. Первые дробления происходят внутри прозрачной оболочки, вследствие чего возникшие бластомеры имеют те же размеры, что и зигота. Размеры и масса зиготы не увеличиваются, так как питание клеток осуществляется за счёт резерва питательных веществ самой зиготы. Таким образом, отличительной чертой стадии дробления является отсутствие роста вновь образованных клеток и репликация ДНК в ядрах после каждого
