
деления. В то же время бластомеры при каждом клеточном делении становятся мельче, так как масса делящейся цитоплазмы последовательно уменьшается. Отсутствие роста бластомеров способствует восстановлению ядерно-плазматического отношения, сниженного в процессе овогенеза на стадии большого роста овоцита за счёт увеличения массы цитоплазмы, до значений, типичных для диплоидных соматических клеток.
На первых этапах дробление регулируется исключительно информацией, содержащейся в яйцеклетке. В этот начальный период развития эмбриона редуплицируется ДНК, происходит активный синтез белка за счёт полученного из яйцеклетки запаса рибосом и молекул РНК. Однако не происходит синтеза новых молекул РНК. Поэтому материнский и отцовский геномы ещё не транскрибируются.
У крупного рогатого скота уже со второго деления дробление бластомеров происходит асинхронно. Один из двух бластомеров начинает увеличиваться, вытягиваться, утончаться посредине и делится пополам. Затем подобному делению подвергается второй из первых двух бластомеров. Асинхронное дробление обусловливает независимое деление разных бластомеров. Эта стадия завершается образованием бластулы. Для млекопитающих стадия бластулы совпадает с периодом позднего асинхронного дробления.
За время прохождения от яйцевода до рога матки (96 часов) образуется плотный шар мелких клеток, который называется морулой. Внутри морулы образуется полость дробления бластоциста, а стадия дробления называется бластулой.
По мере дробления внутренние стенки бластомеров расходятся и между ними образуется полость (бластоцель) наполненная жидкостью, которая увеличиваясь, достигает максимальных размеров на завершающем этапе дробления. Наиболее интенсивное увеличение бластоцели наблюдается после разрыва прозрачной оболочки, происходящего на 8…9-е сутки жизни эмбриона. Нa стадии бластулы из клеток, прилегающих к прозрачной оболочке, образуется тро-
184
фобласт, или питающий листок, который выполняет функцию питания эмбриона. Группа клеток, примыкающая к стенке трофобласта, формирует эмбриобласт, или зародышевый листок.
Все ядра клеток бластулы имеют одинаковый диплоидный набор хромосом, так как происходят из одного ядра оплодотворённой яйцеклетки. На этой стадии клетки или бластомеры обладают свойством равнонаследственности, позволяющей развиваться им в полноценный организм. У крупного рогатого скота равнонаследственность выявлена на стадии двух и восьми бластомеров. Об этом свойстве клеток свидетельствуют случаи рождения двух, трёх, четырёх однояйцевых близнецов. Одна двойня приходится примерно на 80, тройня на 6400 и четверня на 520 000 отёлов. В настоящее время предполагают два механизма образования монозиготных близнецов: разделение эмбриона на две части на двух- или восьмиклеточных стадиях или расщепление эмбриобласта внутри бластоцисты.
Фундаментальные исследования в эмбриогенетике крупного рогатого скота показали, что на стадии бластоцисты имеется возможность разделить эмбрион на две или четыре части. Пересадка части эмбриона коровам-реципиентам позволяет получить в генетическом отношении идентичные двойни или четверни.
В процессе образования бластулы на первых этапах дробление регулируется только генетической информацией, содержащейся в яйцеклетке, без синтеза новых молекул РНК, но на стадии двух бластомеров у млекопитающих происходит синтез РНК уже за счёт наследственной информации самого эмбриона. Вплоть до поздней бластулы реализуется в основном та часть наследственной информации, которая детерминирует общие метаболические процессы, присущие всем делящимся клеткам. И только в следующей стадии – гаструлы – начинается дифференцировка клеток зародыша.
На 10…12-е сутки развития освободившаяся от оболочки бластоциста прикрепляется к слизистой оболочке матки и начинается следующая стадия развития (рисунок 83).
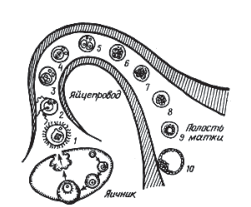
1 – овуляция яйцеклетки; 2 – пенетрация спермиев; 3 – формирование пронуклеусов; 4 – стадия метафазной пластинки; 5 – стадия двухклеточного эмбриона; 6 – стадия четырёхклеточного эмбриона; 7 – стадия восьмиклеточного эмбриона; 8 – морула; 9 – ранняя бластоциста; 10 – имплантация эмбриона
Рисунок 83 – Схема прохождения стадий предимплантационного развития эмбрионов.
В эмбриональный период продолжается у коров 60…65 суток, формируется плацента и начинается закладка органов и тканей.
После стадии бластулы однородный эмбрион расчленяется на три зародышевых листка. Процесс расчленения называется гаструляцией, а сам эмбрион – гаструлой.
Гаструляция приводит к образованию наружного (эктодерма), внутреннего (энтодерма) и среднего (мезодерма) зародышевых листков (рисунок 84).
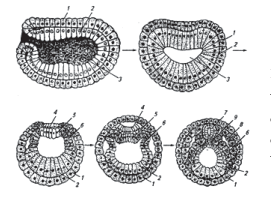
1 – эктодерма; 2 – энтодерма; 3 – первичная кишка; 4 – нервная пластинка; 5 – хордальная пластинка; 6 – мезодерма; 7 – нервная трубка; 8 – целом; 9 – хорда
Рисунок 84 – Гаструляция и образование осевых органов.
В дальнейшем из зародышевых листков образуются внутренние органы, кожа и т. д. В результате превращений эмбрион покрывается наружной или сосудистой оболочкой, называемой хорионом, который обеспечивает поступление в эмбрион питательных веществ и кислорода (рисунок 85).
