
часто вынужден использовать резервы собственных тканей. Схема нейрогормональной регуляции лактации представлена на рисунке 99. Центральная нервная система может влиять на молокообразование через гипоталамо-гипофизарную систему путём изменения обмена веществ в организме и в молочной железе. Роль центральной нервной системы в регуляции лактации отчётливо проявляется в зависимости молочной продуктивности от типологических особенностей высшей нервной деятельности.
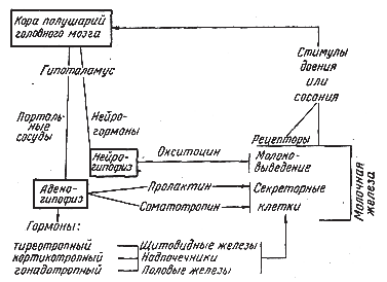
Э. П. Кокорина показала, что у животных сильного уравновешенного подвижного типа по сравнению с коровами слабого, неуравновешенного типа выше молочная продуктивность и устойчивость лактационной кривой, меньше суточные колебания удоев.
Сложные биохимические процессы синтеза молока в железистых клетках альвеол до настоящего времени полностью не изучены. Установлено, что железистые клетки забирают из крови определённые вещества для синтеза составных частей молока. Витамины, минеральные вещества, энзимы из прилегающих кровеносных капилляров избирательно проникают через мембрану альвеол в их полости и становятся составными частями молока.
Все остальные составные части молока синтезируются в альвеолярных клетках. Необходимые для синтеза вещества поступают из крови, которая по капиллярным сосудам притекает к молочным клеткам. Дока-
зано, что венозная кровь вымени более бедна различными веществами, чем артериальная. Так, значительная часть сахара крови задерживается и широко используется для синтеза молочного сахара. Белок молока образуется из глобулина или из аминокислот крови. Жир образуется главным образом из низкомолекулярных соединений. Так как характер скармливаемого жира оказывает очень сильное влияние на качество молочного жира, то путём подбора кормов можно изменять консистенцию масла в желательном направлении. Жирномолочные коровы отличаются более интенсивным брожением и накоплением летучих жирных кислот в рубце, чем жидкомолочные. Активизация щитовидной железы во время зимних холодов повышает жирообразование. Торможение активности этой железы во время летней жары, а также при скармливании коровам в большом количестве капусты и турнепса, содержащих антитиреоидные вещества, снижает жирность молока. Выведение жира из клеток железистого эпителия заметно тормозится при значительном повышении внутривыменного давления через 8…10 часов после дойки. Поэтому при коротких интервалах между дойками содержание жира в молоке выше, чем при больших (например, после ночного перерыва).
Накопление молока и ёмкость вымени
Важнейшей особенностью лактации коров является непрерывное образование молока при периодическом опорожнении вымени – во время доения или сосания. Интенсивность секреции тесно связана с накоплением и выведением молока из железы.
У коров по сравнению с самками других млекопитающих накопляющая функция молочной железы достигла наивысшего развития. Ёмкостную систему железы составляют полости альвеол, протоков, крупных молочных ходов и цистерн. Решающее значение в регуляции вместимости вымени имеет состояние и тонус миоэпителия и гладкомышечных волокон. Их рефлекторное расслабление значительно увеличивает
248
ёмкость при относительно небольшом увеличении объёма вымени, разность наружных промеров которого до и после доения составляет около 10…15 % (даже в пик лактации). Всё строение вымени приспособлено к тому, чтобы смягчать давление на секреторные клетки альвеол.
Сразу после доения секреция и выведение молока в полости альвеол протекают быстро, заполняя альвеолы, протоки и ёмкости железы. В этот период не наблюдается заметного изменения ни очертаний и величины вымени, ни повышения давления внутри него.
По мере накопления секрета диаметр альвеол увеличивается в 3…4 раза, плоская форма их переходит в овальную и шаровидную. Из наполнившихся альвеол молоко вытекает в канальцы и протоки, которые постепенно расслабляются и увеличиваются в объёме. Однако имеющиеся в местах разветвлений сужения препятствуют свободному переходу молока из верхних, мелких протоков в нижние, более крупные протоки и ходы. Сбоку от ходов дальше расположенные дольки, наполнившись молоком, перевешиваются на соединительнотканной сети, их канальцы суживаются, и это также сдерживает переход молока в ниже расположенные протоки и цистерну. Переход молока из альвеолярного отдела в протоково-цистернальную полость проходит не постепенно, а ритмически повторяющимся сбросом. Этим предупреждается значительное увеличение давления внутри вымени и создаются благоприятные условия для секреции и накопления молока в ёмкостной системе железы.
На определенном уровне наполнения молоком вымени в нём происходит сжатие кровеносных капилляров и лимфатических полостей, увеличение давления в альвеолах и в конечном итоге снижение секреции, особенно уменьшается выделение жировых шариков из железистых клеток. Одновременно усиливается реабсорбция молока. Поэтому нельзя допускать переполнения вымени молоком и повышения давления в железе до уровня, препятствующего секреции. Секреция молока сильно замедляется, когда внутривыменное давление превышает 35…40 мм ртутного столба.
