
У высокопродуктивных коров физиологическая ёмкость вымени согласуется с её секреторной функцией. Даже при увеличении интервала между доениями до 12…14 часов интенсивность секреции и удой существенно не снижаются. В ходе лактации соответственно изменению интенсивности секреции и заполнению ёмкости вымени цистернальное давление достигает различного уровня в интервалах между доениями. Критический уровень давления, тормозящий секрецию, в начале лактации значительно выше, чем в конце.
Давление внутри вымени зависит от его формы и качества (железистости), а также от продуктивности коров. Исследования Ч. Тернера показали, что после третьего месяца лактации постепенно уменьшаются суточный удой, физиологическая ёмкость и внутрицистернальное давление.
Г. И. Азимов указывает, что секреция протекает волнообразно. Сразу после доения она на 20…25 % интенсивнее, чем в последующие часы. Этим он объясняет различия в удоях высокопродуктивных коров до 10…15 % при двукратной и трёхкратном доении. Г. И. Азимов и М. Н. Лапинер физиологическую ёмкость вымени определяли по максимальному разовому удою (после пропуска одного доения из трёх). Позже А. П. Бегучев проводил измерения ёмкости вымени после доения через 16-часовой интервал, когда в моче появлялась лактоза. После отёла в течение трёх недель ёмкость железы увеличивается благодаря гипертрофии альвеол и исчезновению отёчности. В течение пяти месяцев лактации ёмкость вымени мало изменяется, а затем быстро уменьшается к моменту запуска коров вследствие перестройки железы. По мере раздоя коров и с их возрастом ёмкость значительно увеличивается.
Средний прирост вместимости вымени между первой и второй лактацией достигал 62…70 %, между второй и третьей – 36…50 %, в последующем – 5…10 %.
Таким образом, ёмкость вымени отражает развитие и активность железистой ткани, а также процесс её инволюции.
Ф. Л. Гарькавый на основании проведённых исследований установил, что ёмкость вымени определяет величину удоя, коэффициент 250
корреляции ёмкости вымени с суточным удоем составляет 0,83, между ёмкостью вымени и месячным удоем коэффициент корреляции – 0,67. То есть удои коров отражают ёмкость железы и количество железистой ткани в вымени.
Некоторые учёные предлагают учитывать ёмкость вымени как селекционный признак коров. Однако приведённые выше данные о тесной связи её с удоями коров показывают, что отбор по продуктивности будет улучшать и ёмкость вымени.
Молоковыведение и внутривыменное давление
Молоковыведение, или молокоотдача – это рефлекторные реакции миоэпителия и гладкой мускулатуры вымени, стенок и сфинктера соска в ответ на соответствующее раздражение кожи сосков и вымени в определённой обстановке (при доении или сосании телёнком). Молоковыведение характеризуют скрытый период рефлекса, изменение внутривыменного давления и интенсивности молоковыведения, а также различная степень торможения, или «задержки», молока. Молоковыведение протекает синхронно во всех четвертях вымени. Нервная система оказывает значительное влияние на эти процессы.
Рефлекс молоковыведение протекает в две фазы. Первая фаза имеет небольшой латентный период (1…4 секунд) и характеризуется расслаблением гладкой мускулатуры цистерны и протоков, кратковременным понижением внутрицистернального давления (происходит подготовка к пропусканию и принятию молока из альвеол). Рефлекторная дуга в первой фазе начинается с рецепторов соска (рисунок 100) и по афферентным волокнам задних корешков (1) проходит к спинному мозгу, далее через дорсальные и боковые канатики (2) спинного мозга к медиальным петлям (3) продолговатого мозга. По стволу мозга импульсы достигают супраоптических ядер (4) гипоталамуса, затем коры больших полушарий (5).
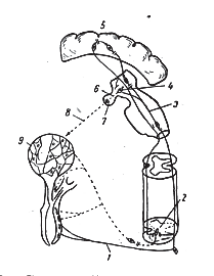
1 – афферентные волокна задних корешков; 2 – дорсальные и боковые канатики спинного мозга; 3 – медиальные петли продолговатого мозга; 4 – супраоптические ядра гипоталамуса; 5 – кора больших полушарий; 6 – супраоптико-гипофизарный тракт; 7 – нейрогипофиз; 8 – действие окситоцина, выделяемого нейрогипофизом; 9 – миоэпителий альвеол
Рисунок 10 0 – С хема не й рогормонального рефлекса молоковыведения (по М. Г. Заксу, 1958).
От супраоптических ядер начинаются эффективные волокна, которые в составе супраоптико-гипофизарного тракта (6) достигают нейрогипофиза (7). Нейрогипофиз в ответ на сосание или доение выделяет в кровь гормон окситоцин, который вызывает сокращение миоэпителия альвеол (8). Имеются данные, что миоэпителий (9) может сокращаться в ответ на механические раздражения железы. На уровне поясничных сегментов спинного мозга происходит переключение импульсов с афферентного на эфферентный путь, представленный симпатическими нервами молочной железы.
Вторая фаза – нейро-гормональная – более длительна и связана с действием окситоцина на миоэпителий альвеол. Латентный период второй фазы около 35…40 секунд. Под влиянием окситоцина (или комплекса гормонов – питуитрина) резко сокращается миоэпителий альвеол, изгоняя молоко в протоки. При этом протоки сокращаются, отчего увеличивается их просвет, облегчая переход молока в цистерну.
Сокращение мускулатуры крупных протоков, цистерны и сфинктера соска регулируется эффективными эфферентными нервами молочной железы, а не окситоцином. Эфферентные пути наружного семенного нерва состоят из нервных волокон, вызывающих спазмы и сокращение гладкомышечных волокон, и из волокон, вызывающих расслабление гладкой мускулатуры.
Благодаря быстрой выработке условных рефлексов на обстановку (стереотип) доения молоко из альвеол и мелких протоков к моменту доения переходит в цистерну, из которой быстро выдаивается.
