
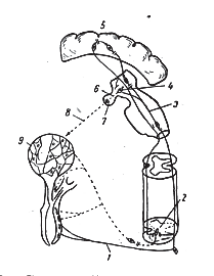
1 – афферентные волокна задних корешков; 2 – дорсальные и боковые канатики спинного мозга; 3 – медиальные петли продолговатого мозга; 4 – супраоптические ядра гипоталамуса; 5 – кора больших полушарий; 6 – супраоптико-гипофизарный тракт; 7 – нейрогипофиз; 8 – действие окситоцина, выделяемого нейрогипофизом; 9 – миоэпителий альвеол
Рисунок 10 0 – С хема не й рогормонального рефлекса молоковыведения (по М. Г. Заксу, 1958).
От супраоптических ядер начинаются эффективные волокна, которые в составе супраоптико-гипофизарного тракта (6) достигают нейрогипофиза (7). Нейрогипофиз в ответ на сосание или доение выделяет в кровь гормон окситоцин, который вызывает сокращение миоэпителия альвеол (8). Имеются данные, что миоэпителий (9) может сокращаться в ответ на механические раздражения железы. На уровне поясничных сегментов спинного мозга происходит переключение импульсов с афферентного на эфферентный путь, представленный симпатическими нервами молочной железы.
Вторая фаза – нейро-гормональная – более длительна и связана с действием окситоцина на миоэпителий альвеол. Латентный период второй фазы около 35…40 секунд. Под влиянием окситоцина (или комплекса гормонов – питуитрина) резко сокращается миоэпителий альвеол, изгоняя молоко в протоки. При этом протоки сокращаются, отчего увеличивается их просвет, облегчая переход молока в цистерну.
Сокращение мускулатуры крупных протоков, цистерны и сфинктера соска регулируется эффективными эфферентными нервами молочной железы, а не окситоцином. Эфферентные пути наружного семенного нерва состоят из нервных волокон, вызывающих спазмы и сокращение гладкомышечных волокон, и из волокон, вызывающих расслабление гладкой мускулатуры.
Благодаря быстрой выработке условных рефлексов на обстановку (стереотип) доения молоко из альвеол и мелких протоков к моменту доения переходит в цистерну, из которой быстро выдаивается.
Сложный условнорефлекторный процесс молоковыведения связан с повышением активности всех частей вымени, его кровеносных и лимфатических сосудов, а также многих функций организма. Усиливается приток крови и повышается температура кожи вымени.
Э. П. Кокорина установила чёткую связь характера молоковыведения с типом нервной деятельности. У коров с высокой подвижностью нервных процессов интенсивность выдаивания более постоянна, чем у коров с плохой подвижностью нервных процессов. По молоковыведению можно судить о силе, уравновешенности и подвижности нервных процессов.
Торможение молоковыведения осуществляется рефлекторным сокращением гладкой мускулатуры устьев протоков, а также нейрогормонально путём выделения адреналина надпочечниками. Адреналин сужает молочные протоки и тормозит освобождение окситоцина.
Для практики доения наиболее важно условнорефлекторное торможение молоковыведения, возникающее при нарушении стереотипа доения: грубое обращение с коровами, испуг и болевые раздражения сосков, возбуждённость во время охоты, перемена места, очередности и времени выдаивания, смена доярки, наличие шума, посторонних лиц и др. Это торможение может быть сильным, средним или слабым. Более сильное торможение чаще проявляется у животных слабого типа нервной деятельности (вплоть до торможения секреции).
Между секрецией, молоковыделением и молоковыведением существует тесная взаимосвязь и согласованность. Эффективность молоковыведения зависит от степени заполнения вымени и соответственно от распределения молока в отделах емкостной системы и достигнутого внутрицистернального давления. Эти условия и регулярные опорожнения вымени влияют на интенсивность и характер секреции.
По данным Ю. М. Огороднего, стимуляция молокоотдачи одновременно вызывает интенсивное выведение жира и других веществ альвеолярным эпителием, что ведёт к быстрому и значительному повышению жирности молока последующих порций удоя. Как полагает Г. И. Азимов, это явление происходит с некоторым запозданием – к концу доения и после него.
Горячие обмывания и массаж вымени стимулируют нейрогормональное открытие протоков и более полное молоковыведение при доении. Быстрое выдаивание обеспечивает более полное опорожнение альвеолярной зоны вымени и обогащение молока жиром. Отдельным коровам присуще свойство увеличивать жировыведение при энергичной молокоотдаче. Это способствует одновременному повышению удоев и жирности истока. Такое свойство представляет интерес для селекции. Всякое торможение молокоотдачи ведёт к снижению продуктивности коров и сокращению у них лактационного периода (самозапуску).
Рефлекс молоковыведения можно характеризовать по латентному периоду, соотношению порций удоя и остаточного молока, изменению цистернального давления и продолжительности или интенсивности молокоотдачи.
Латентный период – время от начала стимуляции до активного изгнания секрета из железы в виде непрерывной струи молока – подвержен значительным индивидуальным колебаниям и длится 15…120 секунд и больше.
Длительность скрытого периода весьма изменчива. Она неодинакова у разных животных и может меняться у одного и того же животного, в ходе лактации постепенно увеличиваясь; зависит от обстановки, или стереотипа доения, степени наполнения вымени молоком (интервал между доениями), функционального состояния железы и возбуждения нервной системы коров.
Установлено, что чем выше разовый удой в различные доения, тем короче скрытый период рефлекса молоковыведения. В начале и в разгаре лактации коров рефлекс молоковыведения протекает бурно и латентный период короче (48… 49 секунд), чем к концу лактации (86…96 секунд). Поэтому во второй половине лактации необходимо более интенсивное и продолжительное стимулирование, чтобы добиться энергичной молокоотдачи и полного опорожнения вымени при одновременном сокращении времени доения коров. Соотношение пропорций удоя определяют с помощью катетеризации сосков. Сначала без стимуляции
254
