
-
Porter J, Thompson F. Влияние токсикоза, вызванного овсяницей, на воспроизводство сельскохозяйственных животных. J Anim Sci 1992;70:1594–1603.
-
Wehrman M, Kojima F, Sanchez T, Mariscal D, Kinder J. Частота случаев преждевременного полового созревания у растущих телок мясных пород. J Anim Sci 1996;74:2462–2467.
-
Holm D, Thompson P, Irons P. Ценность балльной оценки состояния репродуктивного тракта для прогнозирования плодовитости и продуктивности телок мясных пород. J Anim Sci 2009;87:1934–1940.
Отчет 1999, статья 32, 2000. Доступно по адресу http://lib.dr.iastate. edu/beefreports_1999/32
-
Patterson D, Wood S, Randle R. Методы, способствующие управлению воспроизводством ремонтных телок мясных пород. В: Труды Американского общества зоотехнии , 1999. Доступно по адресу http://beefrepro.unl.edu/proceedings/2005collegestat ion/17_tamu_support_patterson.pdf
-
Pence M, BreDahl R, Thomson J. Клиническое применение балльной оценки состояния репродуктивного тракта для прогнозирования исхода осеменения. Исследования мясного скотоводства
Нейроэндокринный контроль эструса и овуляции
Marcel Amstalden и Gary L. Williams
Факультет наук о животных, Техасский университет A & M, Техас, США
Вступление
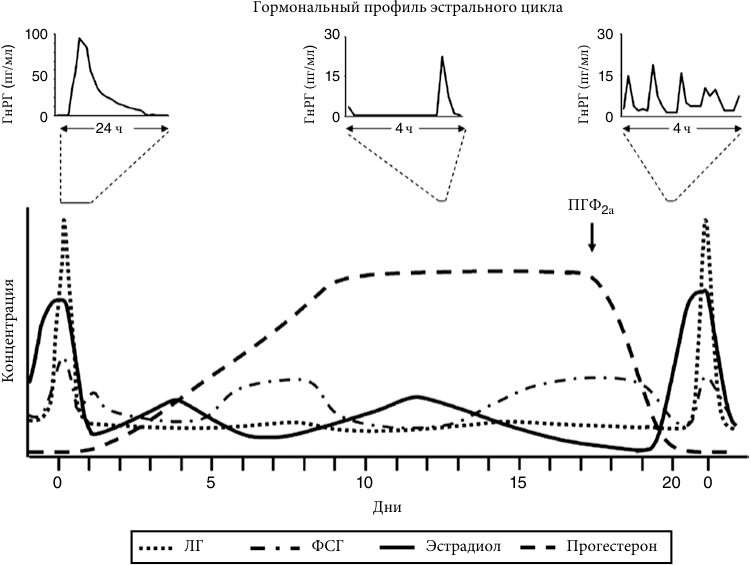
Нейроэндокринный контроль эстрального цикла включает в себя интеграцию ( объединение, совокупность ) множества регуляторных сигналов. Эти сигналы формируют сложную сеть, которая позволяет точно контролировать высвобождение гонадотропинов, необходимых для сложной последовательности процессов развития фолликула, стероидогенеза и овуляции. Секреция гонадотропинрилизинг-гормона (ГнРГ) в гипоталамо-аденогипофизарную портальную систему кровообращения считается основным эндокринологическим механизмом, регулирующим синтез и высвобождение гонадотропина. Внутренние факторы (например, гонадные и метаболические гормоны, факторы роста и сигнальные молекулы) и внешние факторы (например, химические вещества окружающей среды, фотопериод и стресс-факторы) воспринимаются на уровне центральной нервной системы и контролируют секрецию ГнРГ напрямую или, чаще всего через промежуточные пути. При стимуляции ГнРГ синтезируются и выделяются гонадотропины: лютеинизирующий (ЛГ) и фолликулостимулирующий (ФСГ) гормоны. Эти два гонадотропина достигают гонад через кровоток и действуют на яичники, стимулируя рост и созревание фолликулов, овуляцию преовуляторного фолликула и синтез гонадных стероидных и пептидных гормонов. Гормоны гонад, в свою очередь, по принципу обратной связи на центральном и аденогипофизарном уровнях контролируют секрецию ГнРГ и гонадотропинов. Этот сложный регуляторный механизм приводит к динамическим изменениям циркулирующих концентраций репродуктивных гормонов в течение эстрального цикла (рис. 23.1). Продолжительность эстрального цикла у крс колеблется от 17 до 24 дней, в среднем 21 день. 0-й день эстрального цикла считается днем, когда у самки проявляется эструс (стойка с допуском садок) и другое процептивное ( половое ) поведение, такое как садки на сородичей по стаду, беспокойство и мычание. Эструс индуцируется повышением циркулирующих концентраций эстрадиола-17β, связанных с усилением фолликулярного стероидогенеза во время развития фолликула.1 Повышенные концентрации эстрадиола достигают порога за 12–18 часов до начала эструса, вызывая преовуляторный выброс ГнРГ и, следовательно, всплеск гонадотропина ( ЛГ)2 . Начало преовуляторного всплеска ЛГ обычно происходит одновременно с появлением признаков эструса.
Овуляция индуцируется приблизительно через 30 часов от начала эструса и сопровождается резким снижением циркулирующих концентраций эстрадиола. После овуляции фолликулярные клетки подвергаются функциональному превращению в лютеиновые клетки, которые синтезируют и высвобождают прогестерон.1 Во время формирования и созревания желтого тела концентрация прогестерона в крови постепенно увеличиваются и достигает своего пика примерно через 8 дней после овуляции. Период доминирования прогестерона определяется как лютеиновая фаза эстрального цикла. Во время лютеиновой фазы средние циркулирующие концентрации ЛГ относительно низки из-за нечастой эпизодической пульсации ЛГ. Напротив, концентрации ФСГ и эстрадиола колеблются в связи с волнами роста и атрезии фолликулов.3,4 Примерно на 17-й день эстрального цикла у коровы лютеолитические импульсы простагландина (ПГФ2α), высвобождаемые эндометрием, вызывают регрессию лютеиновой ткани и последующее снижение циркулирующих концентраций прогестерона.1 Следовательно, ограничение прогестероном секреции ГнРГ/ЛГ, которое свойственно лютеиновой фазе, снижается, и увеличивается частота их эпизодического высвобождения. Повышение поддержки гонадотропина способствует росту и созреванию фолликулов, усилению фолликулярного стероидогенеза, повышению циркулирующих концентраций эстрадиола и, в конечном итоге, эстральному поведению. Период, характеризующийся низкими циркулирующими концентрациями прогестерона и усиленным развитием фолликулов с последующей овуляцией, называется фолликулярной фазой. Циклические изменения в пульсации гонадотропинов и гормонов яичников, приводящие к фолликулярной активности, как правило, повторяются, за исключением случаев, когда установлена беременность или появляются патологические состояния (например, недостаточное питание, нарушение нормального лютеолиза). Динамические изменения концентраций циркулирующего ЛГ и ФСГ в течение эстрального цикла в значительной степени отражают четкие изменения в характере эпизодической секреции ГнРГ. Во время лютеиновой фазы частота эпизодического выброса ГнРГ и соответствующих импульсов ЛГ5 составляет приблизительно один импульс каждые 4–6 часов.2 Во время фолликулярной фазы эпизодическое высвобождение ГнРГ/ЛГ увеличивается приблизительно до одного импульса в час.2,5
Гормональный профиль эстрального цикла
100 30 30
50 15 15
0 0 0
24 ч 4 ч 4 ч
ПГФ2a
0 5 10 15 20 0
Дни
ЛГ ФСГ Эстрадиол Прогестерон
()пг/млГнРГ )ГнРГ (пг/мл ГнРГ (пг/мл)
Концентрация
Рисунок 23.1 Относительные изменения циркулирующих концентраций лютеинизирующего гормона (ЛГ), фолликулостимулирующего гормона (ФСГ), эстрадиола и прогестерона в течение эстрального цикла у коров. День, в который наблюдается эстральное поведение, обозначается как день 0 эстрального цикла. Циркулирующие концентрации прогестерона увеличиваются после овуляции по мере образования и созревания желтого тела и остаются повышенными на протяжении всей лютеиновой фазы. Высвобождение простагландина ПГФ2α вызывает лютеолиз, что сопровождается снижением циркулирующих концентраций прогестерона. Период быстрого роста и созревания фолликулов и повышенных концентраций эстрадиола в кровообращении, который следует за лютеолизом, характеризует фолликулярную фазу. Повышенный уровень эстрадиола в отсутствие прогестерона приводит к эстральному поведению и преовуляторному выбросу гонадотропин-рилизинг-гормона (ГнРГ; вверху, график слева). Во время лютеиновой фазы прогестерон подавляет частоту пульсирующей секреции ГнРГ (вверху, график посередине) и, следовательно, пульсирующей секреции ЛГ. Во время фолликулярной фазы избавление от ингибирования прогестероном приводит к увеличению частоты импульсов ГнРГ (вверху, график справа) и ЛГ, что способствует созреванию фолликулов и усилению стероидогенеза яичников. Колебания циркулирующих концентраций ФСГ и эстрадиола наблюдаются в связи с началом и развитием фолликулярных волн.
Характер высвобождения ГнРГ/ЛГ в фолликулярную фазу необходим для окончательного развития и созревания фолликула, а также для усиления стероидогенеза. Повышение циркулирующей концентрации эстрадиола во время поздней фолликулярной фазы приводит к преовуляторному всплеску ГнРГ. Всплекс ГнРГ характеризуется устойчивым увеличением концентрации ГнРГ в гипофизарной портальной крови. В начале волны пульсирующий выброс ГнРГ имеет высокую частоту и высокую амплитуду. По мере развития волны пульсирующий характер высвобождения ГнРГ сменяется непрерывным повышением ГнРГ в портальной кровеносной системе.2 Это, в свою очередь, приводит к массивному выбросу ЛГ из аденогипофиза в периферическое кровообращение, аналогично выбросу ГнРГ в портальное кровообращение.2,5 Таким образом, для эстрального цикла характерны два режима эндогенной секреции ГнРГ/ЛГ: тоническое эпизодическое высвобождение и преовуляторный выброс.6 Эти паттерны высвобождения ГнРГ/ЛГ регулируются главным образом эстрадиолом и прогестероном посредством отрицательных и положительных эффектов обратной связи на гипоталамическом и аденогипофизарном уровнях.
Аксоны ГнРГ-нейронов проецируются на срединное возвышение, где ГнРГ сохраняется в секреторных пузырьках, смежных с капиллярами гипоталамо-гипофизарной портальной сосудистой сети, и высвобождается при стимуляции. Через эту специализированную сосудистую сеть, которая соединяет гипоталамус и аденогипофиз (рис. 23.2), ГнРГ достигает аденогипофиза в функционально значимых концентрациях, связывается с рецепторами ГнРГ на поверхности гонадотропных клеток и стимулирует высвобождение гонадотропина. Хирургическое разрушение гипоталамо-гипофизарной сосудистой системы приводит к снижению содержания аденогипофизарных и циркулирующих концентраций ЛГ и ФСГ из-за отсутствия стимуляции ГнРГ гонадотропных клеток.9,10 . Активность нейронов ГнРГ и высвобождение ГнРГ в срединном возвышении в значительной степени регулируются афферентными нейрональными сигналами и факторами, высвобождаемыми глиальными клетками.11,12 Существуют также доказательства структурных изменений в глиальных клетках, которые окружают капилляры срединного возвышения13 и могут способствовать регуляции диффузии ГнРГ в гипоталамо-гипофизарное кровообращение после секреторного эпизода.
Функциональная анатомия
гипоталамо-гипофизарной единицы
Гонадный стероидный контроль
секреции гонадотропина
Клеточные тела нейронов у крупного рогатого скота, которые синтезируют ГнРГ, расположены в континууме ( скоплении ), который простирается от преоптической области до медиобазальной зоны гипоталамуса промежуточного мозга.7,8
Положительным и отрицательным обратным действием эстрадиола и прогестерона на уровне гипоталамуса и аденогипофиза объясняют большинство изменений в характере высвобождения ГнРГ и ЛГ во время эстрального цикла (рис. 23.3).
