
Глава 82
Клонирование путём переноса ядра соматической клетки
Дж. Ланнетт Эдвардс и Ф. Нил Шрик
Кафедра зоотехнии, Университет Теннесси, Ноксвилл, штат Теннесси, США
Введение
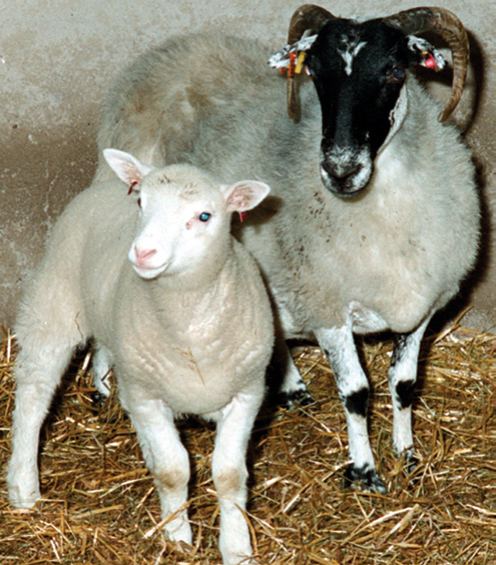
В 1997 году доктор Иэн Уилмут и его коллеги1поразили мир, объявив о рождении овцы Долли — первого в истории клона взрослого млекопитающего (рисунок 82.1). Поскольку получение клона взрослого млекопитающего (то есть генетической копии существующей особи) считалось биологически невозможным, известие о рождении Долли облетело весь мир, привлекло внимание учёных и породило фантастические представления у широкой публики. Интерес к Долли, сохраняющийся и сегодня, обусловлен её неожиданным происхождением. Долли появилась в результате переноса клетки молочной железы, введённой в состояние покоя и взятой из вымени взрослой овцы в возрасте 6 лет, в энуклеированный ооцит (то есть ооцит, из которого ранее удалили ядерную ДНК). Для запуска эмбрионального развития оказалось достаточно краткого электрического импульса. Это показало, что для такого «бесполого» размножения сперматозоид не нужен.
Идея клонирования путём переноса ядра клетки в энуклеированный ооцит возникла не с появлением Долли. Впервые клонов успешно получили методом переноса ядра у земноводных в 1952 году.2Тридцать один год спустя Макграт и Солтер3сообщили о первом успешном клонировании мышей. Вскоре после этого были клонированы овцы,4крупный рогатый скот,5кролики6и свиньи.7Примечательно, что первые успехи в получении клонированного потомства были связаны с использованием тотипотентных или плюрипотентных клеток раннего эмбриона; все попытки использовать более дифференцированные клетки оканчивались неудачей. Неудачи при работе с разными видами во всём мире укрепляли давно сложившееся и широко распространённое представление о том, что клонирование млекопитающих путём переноса ядра биологически невозможно. Первый намёк на то, что это представление не выдержит проверки временем, появился, когда в 1996 году группа доктора Уилмута сообщила о рождении Меган и Мораг; ведущим автором публикации был доктор Кит Кэмпбелл.8В отличие от других животных, родившихся к тому времени, эти клонированные овцы были получены путём переноса ядер клеток культивируемой клеточной линии эмбрионального происхождения, прошедшей до 6–13 пассажей (то есть пересевов клеточной линии для получения большего числа клеток из исходного количества). Поскольку
культивируемую клеточную линию перед переносом ядра выдерживали в среде без сыворотки, первый в истории успех в получении живого клонированного потомства с использованием дифференцированного типа клеток связывали с применением клеток, введённых в состояние покоя. Последующие успехи в клонировании овец укрепили это представление: использовались созданные клеточные линии из клеток молочной железы (как в случае Долли), плода и эмбриона, предварительно введённых в состояние покоя (таблица 82.1).
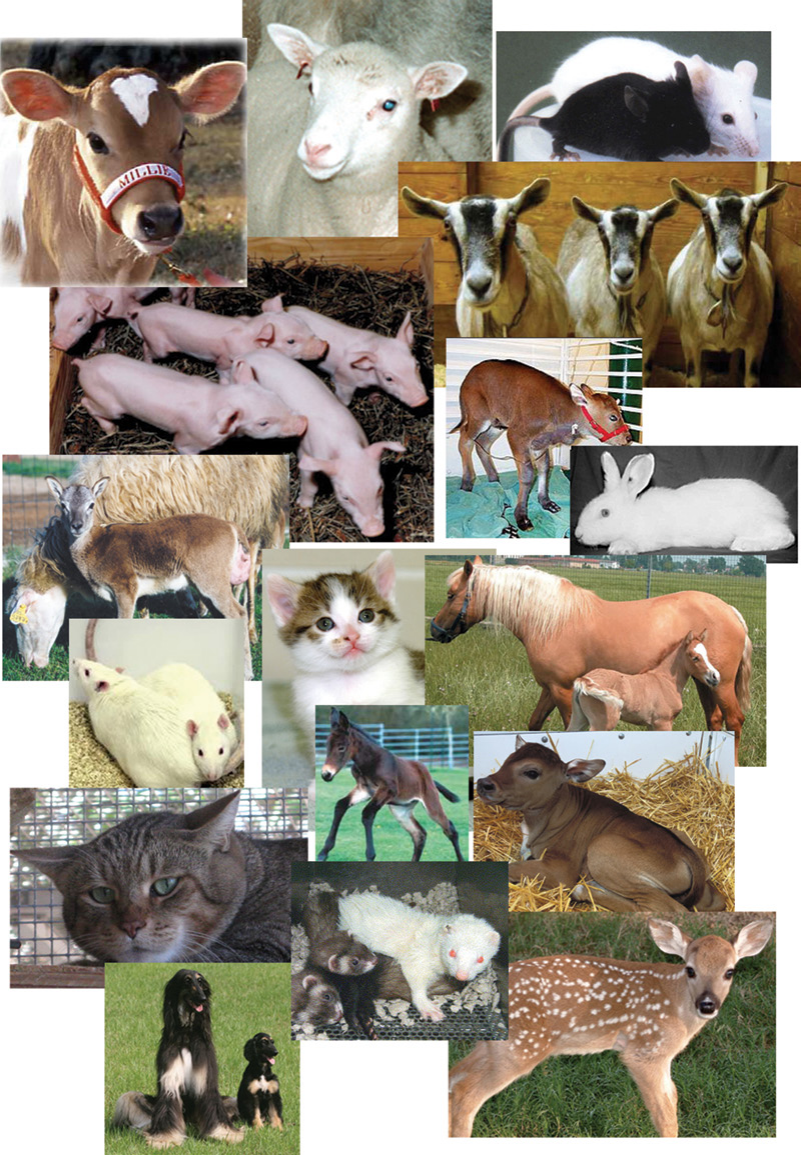
Хотя позднее необходимость вводить клетки в состояние покоя перед переносом ядра была поставлена под сомнение, рождение Долли напомнило всем, что невозможное возможно, если проявлять упорство и мыслить нестандартно. Клонирование Долли и других овец с использованием культивируемых клеточных линий возродило интерес учёных во всём мире, поскольку эта возможность открывала путь к генетической модификации сельскохозяйственных животных. Помня о том, что «невозможное было возможно», перечень взрослых животных, клонированных с использованием культивируемых клеточных линий для переноса ядра, теперь включает, помимо прочих, овцу, крупный рогатый скот, мышь, козу, свинью, гаура, муфлона, кролика, кошку, лошадь, крысу, африканскую дикую кошку, мула, бантенга, оленя, собаку, хорька, волка, буйвола, верблюда и пиренейского козерога (рисунок 82.2). Поскольку то, что удалось сделать с одним видом, вероятно, возможно и с другими, перечень клонированных видов будет продолжать расти. После рождения Долли клонов стали получать путём переноса ядер самых разных клеток тела, поэтому теперь этот метод обоснованно называют переносом ядра соматической клетки (SCNT).
Этапы проведения SCNT
Главная задача при SCNT — перепрограммировать соматическое ядро так, чтобы обеспечить нормальное развитие эмбриона; иными словами, перенести его в среду, которая «заставит» ядро забыть свою соматическую программу и начать функционировать как 1-клеточная зигота. Для перепрограммирования соматического ядра чаще всего выбирают ооцит, остановившийся на стадии метафазы II (MII). Этот выбор логичен, поскольку ооцит содержит большинство, если не все, важнейших компонентов, необходимых для управления ранним развитием эмбриона. В
целом процедура SCNT удивительно сходна у многочисленных видов, клонированных к настоящему времени, что подчёркивает значимость этапов, показанных на рисунке 82.3.
Первый важный этап SCNT — получение соматических клеток от животного, которое предстоит клонировать (то есть донора соматических клеток). Крупный рогатый скот и другие виды взрослых животных клонировали с использованием различных типов диплоидных (2 n) клеток, включая, помимо прочих, фибробласты из разных источников, клетки гранулёзы антральных фолликулов, клетки кумулюса, а также клетки молочной железы, мышц, яйцевода, матки и других тканей. С практической точки зрения относительная простота получения фибробластов путём обычной биопсии кожи делает эти клетки предпочтительным выбором для клонирования взрослых самцов и самок. У коров клетки яичника и гранулёзы можно легко получить с помощью той же трансвагинальной аспирации под контролем ультразвука,
которая применяется для получения яйцеклеток (OPU). После получения соматические клетки можно использовать сразу или после длительного культивирования. Большинство типов соматических клеток легко разделить на отдельные клетки, получив суспензию с помощью раствора на основе трипсина. Интересно, что на результаты сильнее влияет клеточная линия, чем тип клеток. Если результаты оказываются хуже ожидаемых, исследователи могут взять у донора соматических клеток ещё один образец ткани, чтобы создать другую клеточную линию, прежде чем переходить к иному типу клеток. Теперь известно, что для клонирования взрослых животных не требуется вводить соматические клетки в состояние покоя путём выдерживания в среде без сыворотки перед переносом ядра.
Следующий важный этап SCNT — получение ооцитов от самок-доноров. Яичники животных с бойни служат обильным и недорогим источником ооцитов. Возможность получить клонированное потомство после созревания in vitro делает этот источник и подход предпочтительными для получения ооцитов на стадии MII. Когда важно контролировать генетическое происхождение и/или материнское происхождение донорских ооцитов, процедуры OPU позволяют получать небольшое число ооцитов от живых коров. Созревание in vitro хотя и уступает созреванию in vivo в граафовом фолликуле или фолликулах, позволяет точнее отбирать ооциты на стадии MII через 18–20 часов.
Следующий и, возможно, самый трудоёмкий этап SCNT — удаление материнской (ядерной) ДНК из ооцитов на стадии MII с помощью микроинструментов (см. рисунок 82.3). Добавление в среду, в которой находятся ооциты, ингибитора микрофиламентов (например, цитохалазина B) делает цитоплазму более податливой и позволяет механически удалить путём аспирации 5–15% цитоплазмы ооцита, содержащей материнскую (ядерную) ДНК. Это важно для снижения частоты лизиса, который в противном случае происходил бы без добавления ингибитора микрофиламентов. Добавление в среду красителя Хёхста позволяет убедиться, что ядерная ДНК успешно удалена. Если ограничить воздействие ультрафиолетового света только участком микроинструмента, содержащим материнскую ДНК, можно избежать повреждения оставшегося «мешочка» цитоплазмы ооцита: в нём уже нет ядерной ДНК, но сохраняются митохондриальная ДНК, необходимые органеллы и другие важнейшие компоненты, характерные для ооцита.
Следующая задача при проведении SCNT — перенести соматическое ядро из клетки животного, которое предстоит клонировать, в лишённый ядра «мешочек» цитоплазмы ооцита. У большинства видов, за исключением мышей, это достигается путём слияния соматической клетки с лишённым ядра «мешочком» цитоплазмы ооцита под действием электрического импульса. Для этого целую соматическую клетку с помощью микроинструментов механически помещают в перивителлиновое пространство (пространство
Таблица 82.1 Развитие клонированных эмбрионов овец, полученных с использованием трёх разных типов клеток
| Тип клеток | Число слившихся клеточных пар (%) | Число морул/ бластоцист (%) | Число беременностей/ число реципиентов (%) | Число живых ягнят |
|---|---|---|---|---|
| Эпителий молочной железы | 277 (63.8) | 29 (11.7) | 1/13 (7.7) | 1 (0.36%) |
| Фибробласты плода | 172 (84.7) | 47 (37.9) | 5/16 (31.3) | 3 (1.74%) |
| Клетки эмбрионального происхождения | 385 (82.8) | 126 (54.5) | 15/32 (46.9) | 4 (1.04%) |
Источник : адаптировано по: Wilmut I, Schnieke A, McWhir J, Kind A, Campbell K. Жизнеспособное потомство, полученное из клеток плода и взрослого млекопитающего. Nature 1997;385:810–813, с разрешения Nature Publishing Group.
между блестящей оболочкой и лишённым ядра «мешочком» цитоплазмы ооцита). Полученную «клеточную пару» (лишённый ядра «мешочек» цитоплазмы ооцита и соматическую клетку) помещают между двумя электродами и кратковременно воздействуют на неё импульсом электрического тока. У крупного рогатого скота воздействие 2.2 кВ/cm в течение 40 с
вызывает слияние более 70% клеточных пар. Воздействие электрического тока приводит к образованию пор в мембранах обеих клеток. Для переноса соматического ядра в «мешочек» цитоплазмы ооцита путём электрослияния необходим непрерывный контакт между
