
Задержание плодных оболочек
Augustine T. Peter
Ветеринарные клинические науки, Колледж ветеринарной медицины, Университет Пердью, Уэст-Лафайет, штат Индиана, США
Вступление
Плацента, способствующая обмену веществ через эпителий между внутриутробным и материнским кровообращением, создающая плод и тесно связанная с ним, защищенная маткой и избегающая антигенного отторжения, теряет свое назначение сразу же после разрыва пуповины и удаляется после родов. Плацента крупного рогатого скота увлекла ранних фермеров, побудила многих ученых создать более 1500 документов с 1910 года1 и продолжает предоставлять вознаграждение ветеринарам во всем мире из-за своего задержания. Отсутствие выхода плаценты представляет собой задержание плаценты. Множество данных о задержке плаценты было задокументировано в учебниках по териогенологии,2–7 которые основывались на обширном клиническом опыте их авторов и информации, полученной из научных публикаций. В превосходных обзорных статьях ведущих ветеринарных клинических исследователей более ярко проиллюстрированы различные аспекты этого клинического состояния. Однако на протяжении многих лет было выдвинуто много гипотез относительно его возникновения (особенно на тканевом и клеточном уровнях), факторов риска, профилактических мер и схем лечения. Разделы этой темы включают определения, морфологию развития плаценты для лучшего понимания процесса отслойки и этиологии, патогенез, лечение и профилактику. После прочтения этой главы станет очевидным, что среди этих разделов есть много поучительных сходств.
Терминология
Фетальная часть плаценты, а именно плодная мембрана (аллантохорион), обычно отделяется от своей материнской основы в процессе родов. Процесс родов характеризуется сосудистой, сократительной и механической динамикой, направленной на удаление плода и его оболочек (аллантохориона и амниона). Фетальная и материнская части плаценты играют одинаковую роль в регуляции своевременного отделения плодной части плаценты. Следовательно, использование термина «плацента» в этой главе будет указывать на коллективную структуру, созданную маткой и плодом.
Задержка происходит главным образом из-за неспособности ворсин котиледона плода отделиться от крипт материнского карункула. Процесс разделения и инверсии аллантохориона (поверхность аллантоиса, обращенная наружу) завершается в среднем в течение 8 часов после начала родов, в зависимости от количества отелов и возраста пациента. Как правило, все части аллантохориона и амниона должны быть удалены в течение 0,5–12 часов после отела. Таким образом, задержка плодных оболочек свыше этого периода называется задержанной плацентой (последом) или, точнее, задержанными плодными оболочками (RFM), причем термин «плодные оболочки» относится как к аллантохориону, так и к амниону. Хотя для аллантохориона допускается использование понятия «плодной мембраны» (в единственном числе), во избежание путаницы здесь будет использоваться термин «аллантохорион».
Морфология развития
В настоящее время бычья плацента описывается как котиледонная синэпителиохориальная, исходя из морфологии, которая устанавливается примерно к 40–50 дням стельности. Более ранняя классификация как синдесмохориальная была основана на неправильном понимании количества и формы слоев, находящихся между кровообращением плода и матери. Эта классификация нуждалась в исправлении ввиду появления новых данных. Более раннее предположение о том, что эпителий матки утрачивается в процессе плацентации, что приводит к прямому наложению трофэктодермы на соединительную ткань матки матери, более не является верным. В настоящее время известно, что эпителий матки сохраняется, хотя первоначальный его вид в различной степени изменен на участки смешанного фетоматеринского синцития, образованного в результате миграции и слияния трофэктодермальных клеток определенного типа с эпителиальными (UE) клетками матки. Эти двуядерные/гигантские клетки трофобласта (TGC) мигрируют и модифицируют эпителий матки путем апикального слияния с образованием гибридных (смешанных) синцитиальных фетоматеринских бляшек на стыке ткани плода и матери, имеющих до восьми ядер. Эти синцитиальные бляшки заменяются посредством возобновления роста эпителиальных клеток матки к 40 дню, и впоследствии слияние TGC-UE производит только преходящий тринуклеатный минисинцитий (т.е. двуядерные клетки трофобласта у крс сливаются с материнским эпителием матки и превращаются в трехядерный минисинцитий) в течение оставшегося периода беременности.
Результаты исследований обусловили необходимость изменения морфологической терминологии плацентации и определили бычью плаценту как синэпителиохориальную. Приставка «син» указывает на вклад TGC (гигантских клеток трофобласта) в фетоматеринский синцитий и контрастирует с простой микровиллярной интердигитацией (зубчатый контакт или соединение клеток по типу "замка", когда билипидные мембраны соседних клеток вместе с участком цитоплазмы вдавливаются друг в друга, чем достигается большая поверхность соприкосновения и более прочная механическая связь) между трофобластом и маточным эпителием (эпителиохориальная) на остальной части плаценты. Понятие "котиледонная" относится к наличию локализованных областей трофэктодермальной пролиферации, образующих котиледоны в плаценте, где каждый котиледон является плодной частью плацентомы. Плацентома образована пучком ветвящихся ворсинок хориона из котиледона, которые растут и входят в соответствующие материнские карункулярные крипты, обеспечивая соединение по типу пальцев в перчатке. Эти крипты развиваются из предварительно сформированных плоских эндометриальных карункулов (рис. 49.1), присутствующих у небеременных коров, которые расположены рядами вдоль маточных рогов. Обычно плацента содержит 80–90 таких плацентом. Плацентомы связаны между собой областями плоского наложения между трофобластом и эпителием карункула (CE). Клетки СЕ сходны с клетками UE (маточного эпителия) и гомогенны по популяции в отличие от трофобласта. Плацентомы гарантируют прочное закрепление за счет дополнительной интердигитации ворсинчатых древ плода с материнскими криптами и за счет интердигитации апикальных микроворсинок на мононуклеарных ( одноядерных) клетках трофобласта (UTC) и карункулярного эпителия как напрямую через межклеточные контакты смежных клеток, так и опосредованно через внеклеточный матрикс. Во-вторых, образование плацентом с синэпителиохориальным межгемальным барьером обеспечивает значительное увеличение площади поверхности, необходимой для постоянно увеличивающегося обмена веществ между маткой и плодом. Важно отметить, что макроскомическая морфология плаценты и характер фетоматеринской взаимосвязи (архитектура ворсинок/крипт плаценты в середине и конце стельности) значительно различаются у разных видов полорогих жвачных но детальная клеточная структура материнско-плодного интерфейса (общая граница взаимодействия двух функцинальных объектов) одинакова на протяжении всей беременности.
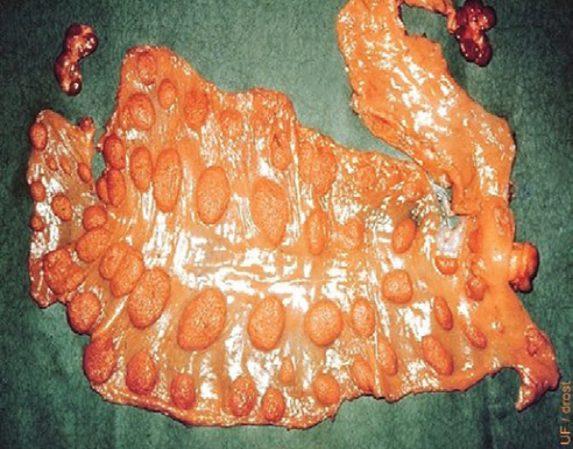
Уместно указать, что у крупного рогатого скота материнская ткань не выделяется в последе. С другой стороны, несколько ворсин плода могут застрять и остаться в материнских криптах.
Этиология
Созревание плаценты в сочетании с соответствующими структурными, эндокринологическими и иммунологическими изменениями приводит к легкому отделению и изгнанию плодных оболочек. Кроме того, сосудистые, сократительные и инволюционные изменения, которые происходят в матке до и во время родов, также помогают в отделении и изгнании плодных оболочек. Должно быть общеизвестно, что процесс созревания и своевременного отделения последа включает в себя хорошо организованную регуляцию как материнским, так и плодным компонентами плаценты.
Созревание плаценты
Установлено, что физиологические роды происходят на фоне зрелых плацентарных структур. Тот факт, что индукция родов сопровождается RFM (задержанием последа) , в большинстве случаев подтверждает наблюдение, что незрелость плацентом может быть одним из факторов, способствующих RFM, поскольку в таких случаях роды начинаются раньше срока. Также тот факт, что RFM происходил в большинстве случаев аборта, подкрепляет мнение, что зрелый плацентом является необходимым условием для отделения аллантохориона.
Эндокринные изменения
Созревание плаценты сопровождается специфическими эндокринными изменениями. Эти изменения важны для того, чтобы вызвать контрактительные (сократительные) и апоптотические события и экспрессию генов для матричных металлопротеиназ (семейство внеклеточных цинк-зависимых эндопептидаз, способных разрушать все типы белков внеклеточного матрикса) и их ингибиторов. Хотя зрелая плацента способна инициировать благоприятные стероидогенные и арахидоновые каскады, измененная экспрессия механизмов антиоксидантной защиты в этот момент может нарушить стероидогенез на клеточном метаболическом уровне. Недостаточная экспрессия антиоксидантных защитных механизмов против активных форм кислорода (АФК) может привести к дисбалансу между выработкой и нейтрализацией АФК, препятствуя правильному отделению аллантохориона.
Ближе к родам наблюдается увеличение концентраций периферического эстрадиола и менее заметные изменения уровня прогестерона. Прогестерон проникает в плацентомы, что может способствовать его "впитыванию" в плацентому, приводящему к структурным и функциональным изменениям. Эти изменения способствуют сокращению миометрия под воздействием эстрадиола наряду с другими гормонами, включая окситоцин и специфические простагландины. Важно отметить, что эти структурные изменения могут произойти только в зрелой плацентоме, которая подвергалась воздействию достаточного по продолжительности и количеству эстрадиола.
Что касается простагландинов, тип и количество продуцируемых простагландинов могут влиять на сократимость миометрия. Например, более низкое отношение простагландина (PG)E2 к PGF2α в маточноплацентарном компартменте плацентомы и повышенный статус рецептора стероидного гормона, возможно, снижает скорость апоптоза, возникающего в эпителии хориона до отела.
Здесь могут быть и другие неизвестные факторы, участвующие в регуляции апоптоза; тем не менее, признано, что дисфункциональная экспрессия апоптотических регулирующих факторов может способствовать нарушению отделения мембран.
Экспрессия матриксных металлопротеиназ и противодействующие тканевые ингибиторы металлопротеиназ в плодном компартменте важны для баланса образования и деградации внеклеточного матрикса, что имеет решающее значение для разделения аллантохориона. В частности, они ответственны за разрушение коллагена в ворсинках и помогают в отделении ворсин от крипт. Наконец, следует помнить, что, несмотря на сложность различных простагландинов и их производство и наше неполное понимание их специфической роли, использование простагландинов для предотвращения возникновения задержания последа при индуцированных родах привело к неубедительным результатам.
Сосудистые изменения
Во время сокращений матки давление матки постоянно изменяется, что приводит к чередованию анемических и гиперемированных состояний и временных изменений на поверхности ворсин хориона плода. В результате нарушается прикрепление хорионического эпителия в материнских криптах. Кроме того, последующий разрыв пуповины прекращает кровоснабжение ворсин плода и помогает в процессе отделения, уменьшая размер ворсин. Анемические изменения, которые происходят с ворсинками плода после отела изза разрыва пуповины, имеют важное значение, и эти механические процессы отслоения не следует недооценивать. Идентичные изменения происходят в карункулах из-за сокращений матки. Продолжающиеся сокращения матки уменьшают количество крови, направляемой в матку. Следовательно, карункулы становятся меньше по размеру из-за уменьшения кровоснабжения, что приводит к расширению материнских крипт.
Структурные изменения
Хотя крепкое соединение в плацентоме необходимо во время беременности, оно должно исчезнуть при отделении аллантохориона. На самом деле, отчетливое ремоделирование и ослабление связи происходит в плацентоме во время поздней беременности. Преобразования, которые происходят в эпителии плаценты и соединительной ткани в течение последнего месяца беременности, подготавливают плаценту к критическому разрыхлению тканей, вовлеченных в фетоматеринскую интердигитацию. Этот процесс должен проходить без помех и завершиться разделением аллантохориона в нужное время. Изменения включают прогрессивную коллагенизацию соединительных тканей матери и плода, уплощение эпителия слизистой оболочки материнских крипт возле ножки карункула, и появление TGC (гигантских клеток трофобласта) , которые становятся многоядерными незадолго до процесса отслойки.
Иммунологические изменения
Экспрессия главного комплекса гистосовместимости (ГКГ) класса I в бычьих трофобластных клетках и их жесткая регуляция являются биологически значимыми. На ранних сроках беременности полное прекращение экспрессии ГКГ класса I клетками трофобласта, повидимому, имеет решающее значение для нормального развития плаценты и выживания плода (т.е. отсутствует иммунный ответ на плод) . Этот иммунологический камуфляж жизненно важен, чтобы избежать распознавания по многофакторному набору клеточных и гормональных механизмов, которые опосредуют отторжение. В зрелой плаценте материнское иммунологическое распознавание фетальных белков ГКГ класса I вызывает иммунные и воспалительные реакции, которые способствуют отторжению аллантохориона при родах. Интересно отметить, что в этих ситуациях наблюдается четкая адаптация иммунной системы к функции, отличной от защиты от патогенов. Таким образом, совместимость ГКГ имеет значительные молекулярные последствия и может привести к повышенному риску задержания плаценты. Воспалительный ответ сопровождается материнским иммунным ответом. В воспалительном процессе проявляются два характерных действия, а именно продуцирование нейтрофил-активирующих факторов и хемотаксическая активность в отношении нейтрофилов. Они важны для успешного иммуно-ассистированного (с помощью иммунитета) отслоения аллантохориона. Было высказано предположение, что функция периферических лейкоцитов может быть снижена, что может быть причиной или следствием задержки последа, ведущей к другим осложнениям на этом фоне, таким как мастит.
Сократительные изменения
Потуги, наблюдаемые во время изгнания плода, приводят к изменениям формы плаценты из-за брюшного давления, что является важным шагом в процессе отделения. Одновременные и периодические сокращения стенок матки изменяют форму карункулов с овальной на округлую из-за давления на них со стороны плода, способствуя отделению котиледонов от карункулов. Характерные резкие сокращения слоев круговой мышцы миометрия (представляют внутренний слой миометрия) , которые тесно следуют друг за другом и накладываются на сокращения продольных мышечных слоев миометрия, наблюдаемые в процессе родов, помогают не только изгнать плод, но и отделить алланохорион. Эти ритмичные волны сокращения (каждые 3–4 мин) заставляют котиледоны веерообразно раскрываться в момент прохождения над ними волны и позволяют отделить аллантохорион. Следовательно, нарушение сокращения миометрия может привести к задержанию последа. В это время прогестерон, диффундирующий из плаценты в миометрий, и эстрадиол, синтезируемый локально, могут играть роль в инициации и подавлении этих сокращений. Наличие маточных сокращений даже после родов помогает в процессе расслоения. Они также необходимы, чтобы предотвратить кровоизлияние и помочь в изгнании плодных оболочек. Эти перистальтические и сокращающие волны, помимо уменьшения размеров матки и способствования выходу плодных оболочек в родовой канал, также могут заметно уменьшить количество крови, циркулирующей в эндометрии. Кроме того, нельзя игнорировать влияние окситоцина и происходящей в это время инволюции матки в данных процессах, поскольку, согласно наблюдениям, инъекция окситоцина и сосание вымени теленком оказывали положительные эффекты на выделение плодных оболочек.
Патогенез
Принимая во внимание существенные изменения, которые облегчают процесс отделения и изгнания плодных оболочек, очевидно, что задержка или безуспешное отделение и изгнание могут быть вызваны вмешательством в эти изменения. Обращение внимания на мешающие факторы и их устранение, если это возможно, снизит заболеваемость. Некоторые из этих факторов обсуждаются в разделе о профилактике. В целом, мешающие факторы могут быть классифицированы как прямые или косвенные.
