
Инфекционные агенты: Эпизоотический аборт (Предгорный аборт)
Jeffrey L. Stott, Myra T. Blanchard и Mark L. Anderson
Школа ветеринарной медицины Калифорнийского университета, Дейвис, Калифорния, США
Вступление
Эпизоотический аборт крупного рогатого скота (ЭА), обычно называемый «предгорным абортом», впервые был признан в начале 1950-х годов в Калифорнии. Для ЭА характерны аборты на позднем сроке или рождение слабых телят от маток, которые паслись в предгорных районах Калифорнии, Невады и южного Орегона1 в течение первого и второго триместров беременности. Заболевание было и остается основной причиной абортов у мясного скота в штате Калифорния; статистика по штатам Орегона и Невада отсутствует.1–4
Применение методов молекулярной биологии к аутопсийным тканям больного плода в конечном итоге идентифицировало агент в 2005 году как дельта-протеобактерию. Последовательности 16S рРНК, полученные из патогена, установили 89,4% гомологию с Polyangium cellulosum, представителем отряда Myxococcales.6 Единственным другим патогеном млекопитающих в этом классе прокариот является Lawsonia intracellularis - дельта-протеобактерия, в основном связанная с энтеритом у свиней. Бактериальному агенту ЭА (баЭА) присвоят род и вид после завершения дальнейших исследований его характеристик.
Диагностика
Этиологический агент
Многочисленные поиски по выявлению этиологического агента ЭА охватывают по меньшей мере 50 лет. Эти усилия привели к выявлению ряда микроорганизмов-кандидатов на роль возбудителя заболевания, включая хламидиоз, неспецифический вирус (частицы типа С), Borrelia coriaceae и неспецифическую спирохету.5 Разработка в 2000 г. воспроизводимого метода передачи экспериментального заболевания облегчила усилия по выявлению этиологического агента. Инокуляция наивных стельных телок (срок стельности ~ 100 дней) криоконсервированными гомогенатами тимуса плода, полученными из отобранных ЭА-плодов, обеспечивала надежный механизм предсказуемой передачи возбудителя развивающемуся плоду с сопутствующим развитием классического ЭА. Исследования чувствительности к антибиотикам проводились с использованием экспериментов по передаче заболевания стельным телкам; агрессивное лечение пенициллином и/или тетрациклином во время заражения телки предотвращает последующее развитие заболевания у плода, предоставляя убедительные доказательства того, что этиологическим агентом был прокариот.5
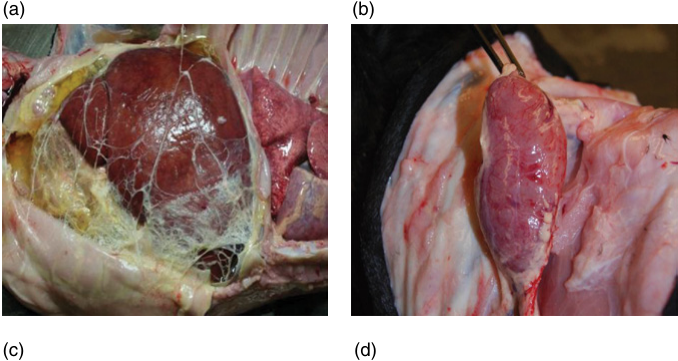
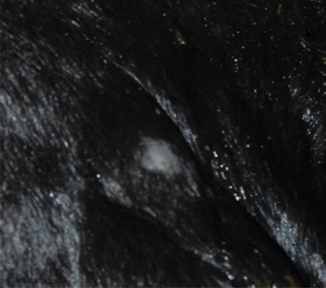
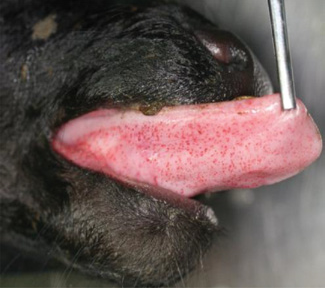
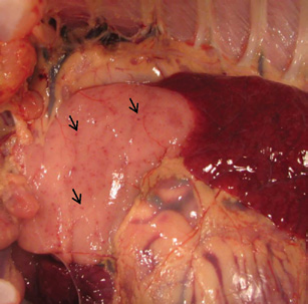
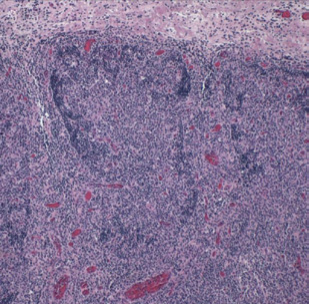
Исторически ЭА диагностировали по комбинации данных, включающих уникальные патологии плода, повышенный уровень иммуноглобулина в сыворотке плода и анамнезу маток, пасущихся в областях, которые считались эндемичными для заболевания во время беременности.2,3 Макро- и микроскопическая патология, связанная с ЭА, обычно хорошо выражена. Абортированные плоды, как правило, находятся в отличном состоянии (не аутолизированы), но имеют множество грубых аномалий, которые могут включать обширный асцит с избыточным количеством фибрина (рис. 61.1а), приводящий к вздутию живота, разбуханию печени, увеличению селезенки и лимфатических узлов (рис. 61.1b)), поражениям кожи (рис. 61.1c) и петехиальным кровоизлияниям на слизистых оболочках (полость рта, язык и веки) (рис. 61.1d) и в тимусе (рис. 61.2a). Микроскопически поражения широко распространены и имеют сосудистую ориентацию, характеризующуюся инфильтрацией лимфоцитами и мононуклеарными фагоцитами.2,3 Очаговые некротические поражения могут присутствовать в организованных лимфоидных тканях, а в тимусе возникают патогномоничные (свойственные данной болезни) поражения, характеризующиеся истощением корковых тимоцитов и инфильтрацией макрофагами3 (рис. 61.2b).
(a) (b)
(c) (d)

(a) (b)
Микробиологическая диагностика ЭА остается затруднительной из-за невозможности культивирования возбудителя. Хотя ограниченная кратковременная репликация баЭА наблюдалась в первичных культурах макрофагов, полученных из аутопсийных лимфоидных тканей плода, самостоятельное размножение бактерии как в первичных, так и в устойчивых клеточных линиях было невозможно; все попытки культивировать баЭА на синтетических носителях также потерпели неудачу.5 Тогда были разработаны анализы полимеразной цепной реакции (ПЦР), как традиционные, так и на основе зондов типа TaqMan, с целью выявления бактериального рибосомального гена 16S.6–8
Оба анализа могут быть использованы для выявления присутствия баЭА в аутопсийных тканях инфицированных плодов, имеющих классическую патологию ЭА. TaqMan является предпочтительным анализом для выявлении низких уровней бактерий в аутопсийных тканях, полученных от предположительно зараженных плодов, таких, как плоды с сомнительной или неклассической патологией ЭА и слабых телят, как подсосных, так и нет. Анализ TaqMan также предпочтителен для выявления баЭА в переносчике инфекции, поскольку только случайный зараженный клещ будет иметь достаточные уровни бактерий, определяемые стандартной ПЦР.7
(a)
(b)
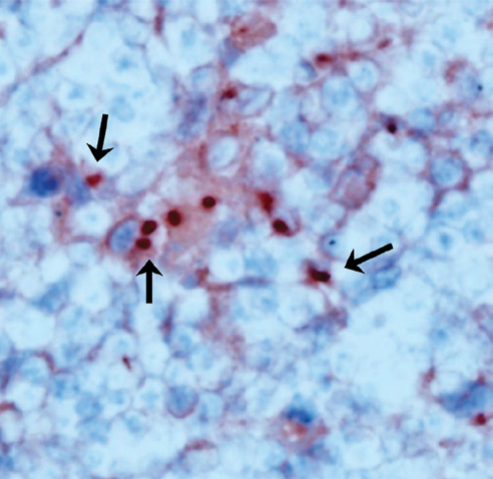
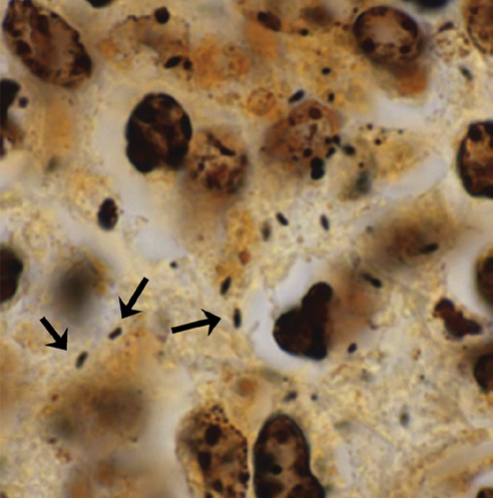
Обычные бактериальные гистологические способы окрашивания не выявляют баЭА в тканях плода, поэтому для его микроскопической визуализации в срезах тканей некропсии, фиксированных формалином, использовали модифицированную технику окрашивания серебром по Штейнеру, примененную к отдаленно родственной дельтапротеобактерии Lawsonia intracellularis. Окрашивание по Штейнеру и иммуногистохимия, применяемые к тонким срезам тканей некропсии, фиксированных формалином (рис. 61.3а, б), и иммунофлюоресцентный анализ, применяемый к отпечаткам мазков и/или гомогенатам свежих тканей, являются современными предпочтительными методами микроскопической диагностики ЭА.9,10
Серологический анализ на основе флуоресцирующих антител в настоящее время проходит валидацию (экспериментальное подтверждение эффективности) . Данный анализ представляется имеющим хорошую специфичность и чувствительность, и должен оказаться полезным диагностическим методом, когда большая часть баЭА устранена иммунной системой плода. Однако, интерпретация результатов серологического анализа будет затруднена у подсосных телят из-за присутствия материнских антител.
Патогенез
По-видимому, баЭA получает доступ к развивающемуся плоду через плаценту от зараженной матери. Инфицированная через укус клеща или посредством экспериментальной прививки стельная корова не имеет явных клинических признаков. Реакции на экспериментальные укусы клещей, зарегистрированные в различных источниках, были, скорее всего, реакцией на микробную контаминацию и/или слюну клеща. В развитии плода есть «окно», когда он подвержен инфекции, которая в конечном итоге приведет к заболеванию. Это "окно" точно не установлено, но обычно считается, что восприимчивость возникает на гестационном сроке 60–140 дней. Восприимчивость на более ранних сроках стельности (<60 дней) не известна. Хотя патоген, повидимому, не влияет на зачатие, изучается возможность того, что он может вызвать раннюю эмбриональную гибель у небольшого процента инфицированных животных. Заражение плода - это медленный процесс с развитием явных поражений, которые не проявляются в течение 2–3 месяцев.3 Бактерии, по-видимому, реплицируются внутриклеточно в гистиоцитах, что определяется иммуногистохимией (рис. 61.2); при краткосрочном культивировании макрофагов, полученных из тканей аутопсии плода репликация происходит чрезвычайно медленно (~1 день). Внутриклеточный характер инфекции, сосудистая ориентация поражений по всему плоду, а также медленное и хроническое развитие заболевания соответствует гипотезе о том, что поражения являются иммунологически опосредованными. Медленный рост бактерий, несомненно, ответственен за медленное распространение по всему телу и развитие поражений, совпадающее с развитием иммунологического созревания иммунной системы плода. Суягные овцы, по-видимому, не подвержены предгорному аборту; неопубликованные исследования, в которых беременные овцы были инфицированы в первом триместре, привели к рождению здоровых ягнят. Эти последние исследования соответствуют гипотезе о том, что бактерии размножаются и распространяются медленно, а у овец период беременности слишком короток для развития иммунологически опосредованных поражений и абортов. Чернохвостый длинноухий олень (Odocoileus hemionus) служит основным переносчиком клеща, но нет никаких свидетельств того, что ЭА встречается у этого вида. Продолжительность беременности у них является промежуточной (6–7 месяцев) между овцами и крупным рогатым скотом и может быть слишком короткой для развития болезни. С другой стороны регулярное воздействие бактерий на организм через укусы клещей может привести к выработке иммунитета, и в тех случаях, когда происходят аборты, плоды быстро подбирают падальщики, не оставляя никаких следов. Многочисленные попытки вызвать заболевание у иммунокомпетентных лабораторных животных, таких как мыши и кролики, потерпели неудачу.
Однако, мыши с тяжелым комбинированным иммунодефицитным заболеванием (SCID) подвержены инфицированию баЭА. У мышей с C3H-scid появляются признаки истощения через 7–8 недель после заражения, а еще через 2–3 недели им требуется эвтаназия, как неизлечимо больным.10 Единственным очевидным грубым поражением является увеличенная селезенка, которая содержит большое количество бактерий. Криоконсервированные баЭА-инфицированные клетки селезенки мыши с SCID являются отличным источником бактерий для предсказуемой передачи инфекции беременным телкам.
